Appearance
南方巨恐鸟:站得最高,却不是最重的鸟
新西兰南岛巨型恐鸟的骨架、被算错的体重,和一场正在进行的复活计划
如果只看数字,新西兰的南方巨恐鸟(Dinornis robustus)几乎是鸟类世界里的身高冠军:它站立时背高约2米,伸长脖子能够到离地3.6米处的树叶,这个高度至今没有被任何一种现存鸟类超过。毛利人把它叫作moa nunui,意思就是“大恐鸟”。但接下来这个数字可能会让人意外——2013年科学家把这副骨架扫描了一遍,算出来的体重只有196千克。一只比鸵鸟略重的大鸟,究竟是怎么撑起3.6米身高的?
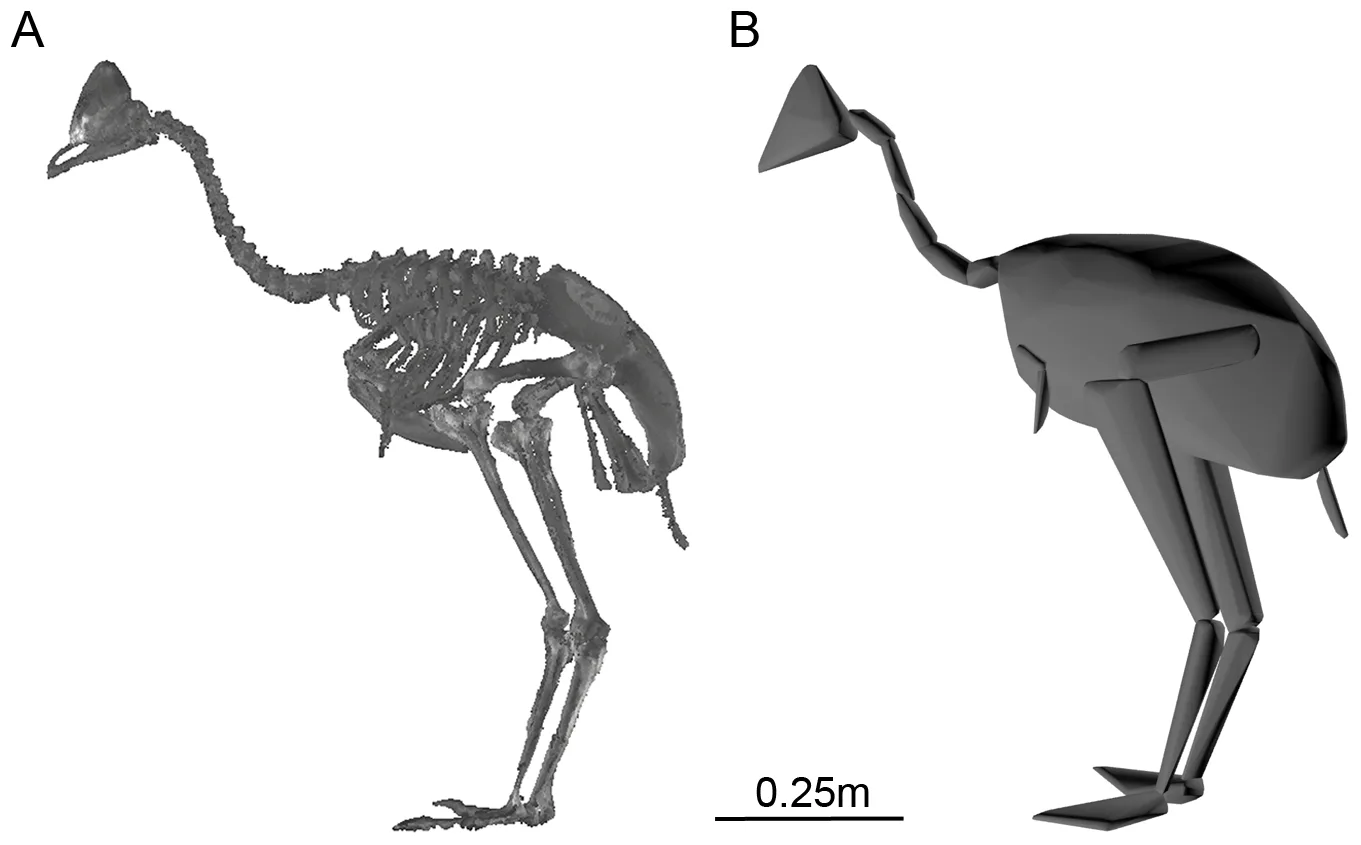
南方巨恐鸟整副骨架的CT扫描重建与软组织模型:左为骨骼本身的扫描渲染,可见细长的颈、发达的肋骨与粗大的股骨;右为在同一姿态外包一层凸包后的深灰色软组织轮廓,中间标0.25米比例尺(Brassey等2013年论文图版,CC BY,非商业引用)
它的学名里带着robustus,这个词在动物学里是“强壮的、结实的”的意思,配上3.6米这个身高,很容易让人以为它是新西兰最沉重的鸟。但那篇论文给出的判断正相反:它的腿骨并不比现生的鸵鸟和鸸鹋更强壮。研究者把几种恐鸟的腿骨放在一起比较,发现它的纤细得出奇;同一批数据里唯一长出粗壮腿骨的,是另一个叫厚足恐鸟(Pachyornis australis)的物种,而它的体重只有50千克。
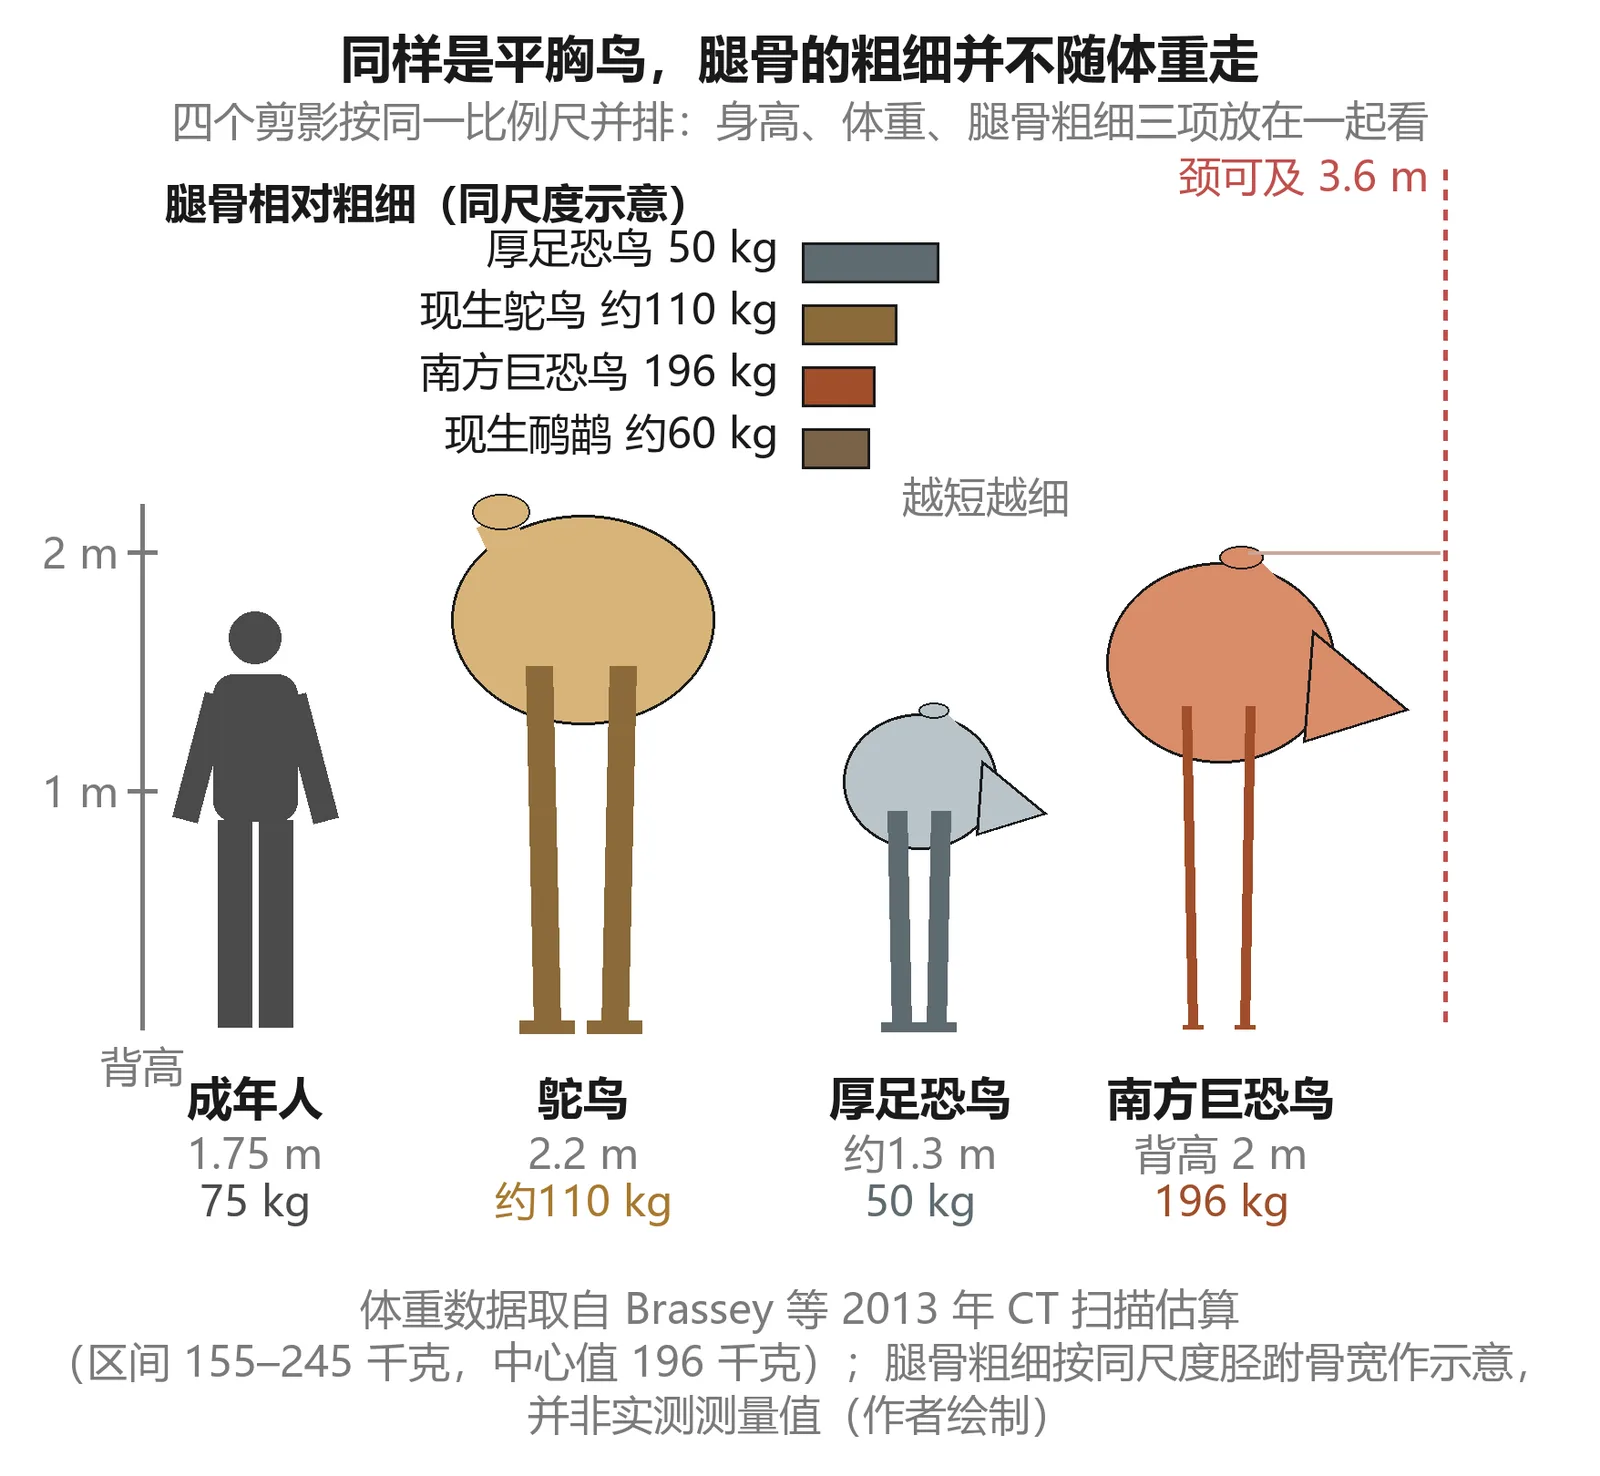
四个剪影按同一比例尺并排:成年人、现生鸵鸟、厚足恐鸟与南方巨恐鸟。南方巨恐鸟背高2米、伸颈可及3.6米,体重却只有196千克;体重不到它四分之一的厚足恐鸟(约1.3米、50千克),腿骨反而是这四者中最粗的。右上为按同尺度胫跗骨宽所作的腿骨粗细对比示意(作者绘制)
给一个灭绝几百年的动物估体重,并不是找一具尸体上秤那么简单。过去的做法对研究对象的骨头进行测量,再拿现生同类做比例换算。问题在于,鸟类骨骼的粗细和体重之间的对应关系并不稳定,鸟越大,误差就被放大得越厉害。科学家布拉西举了个极端例子:如果有人想采用量取犬齿长度再按家猫门牙放大的办法估算剑齿虎的体重,这种推算显然站不住脚。而恐鸟也没有活的同类可类比。
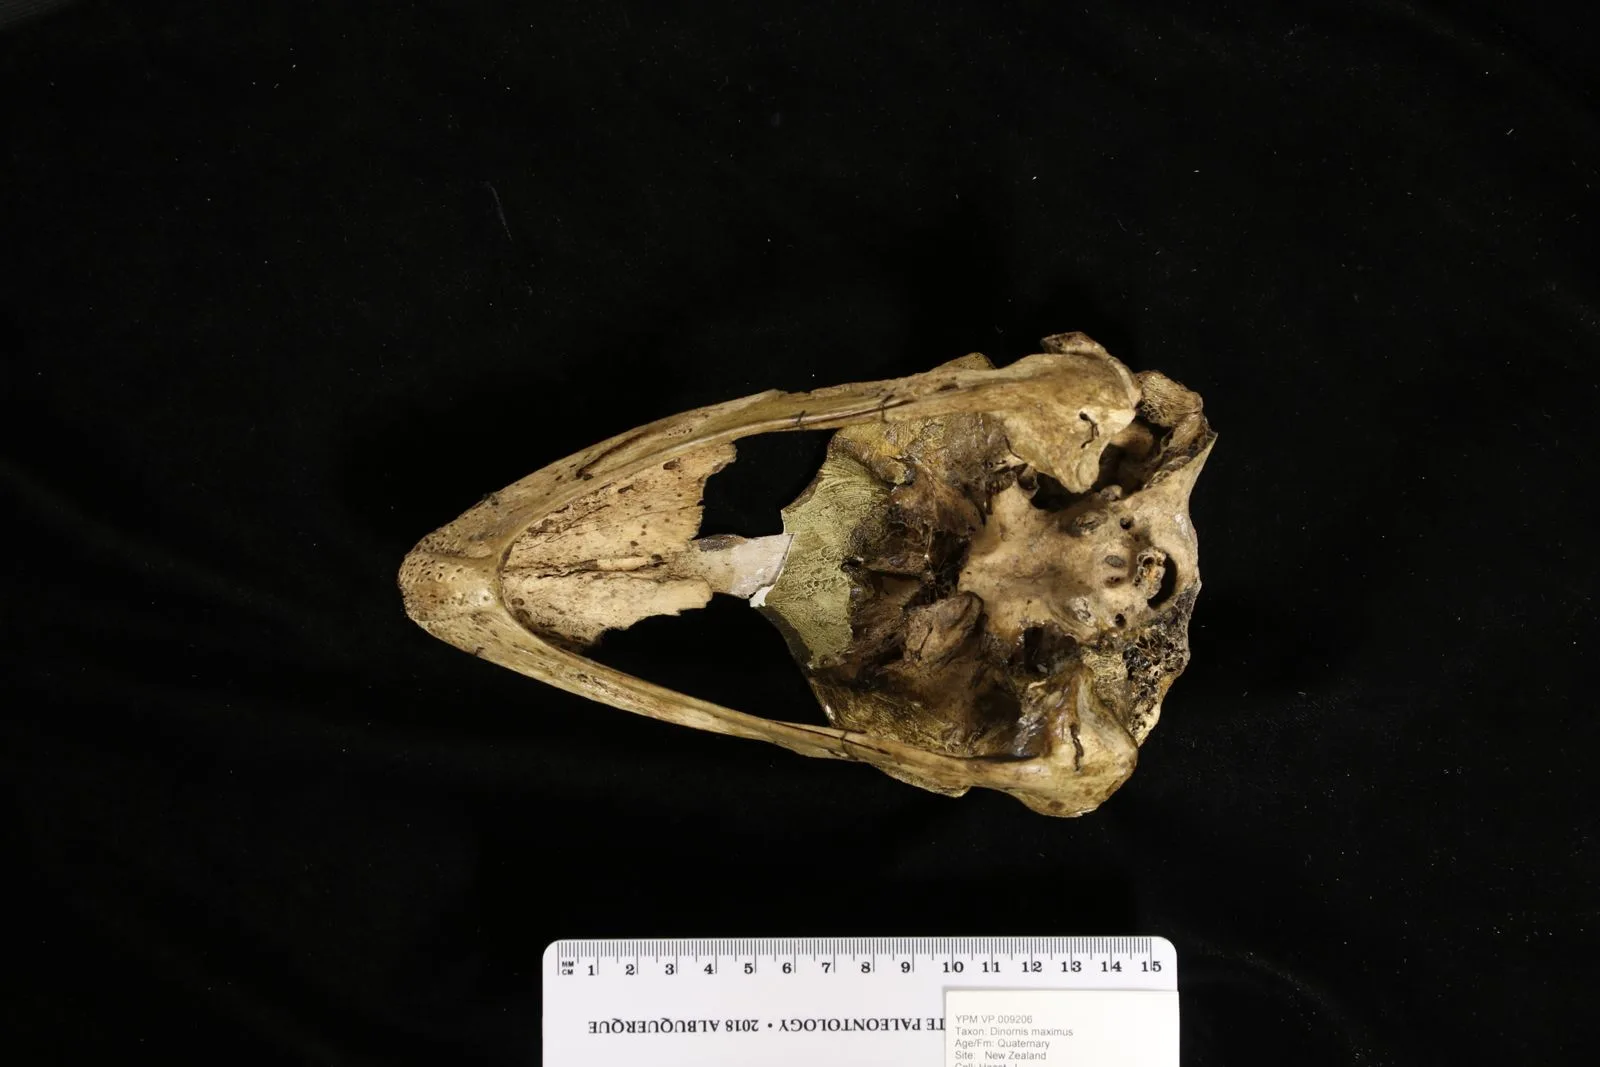
Dinornis maximus的头骨侧视照片(YPM VP00920):上下颌细长而浅,眼眶大,颌骨后段与颅骨相接处可见保存下来的骨质;下方附15厘米比例尺与标本签(Dinornis maximus为Dinornis robustus的历史异名,耶鲁大学皮博迪博物馆藏,CC0)
布拉西的做法是把整副骨架送去CT扫描,得到每块骨头精确的三维形状,再在骨架外侧套上一层紧贴的凸包,当成肌肉和皮肤轮廓,然后把凸包分割成足、掌、胫、股、颈、头等十几个单元,逐个算出体积,再按组织密度换算成质量。这套方法先在现生食火鸡身上验证过,凸包体积和文献记载体重之间的相关系数达到0.956以上,随后才被用到化石标本上。
有意思的是,在那篇论文之前,南方巨恐鸟的体重估计值还更高。二百多年里,学者们给出过230千克、250千克甚至更高,这些数字全部来自“腿骨越粗、体重越大”的推断链条。当CT数据把真相摆了出来,这些估计值要集体下修:布拉西给出的区间是155到245千克,中心值196千克。恐鸟就这样退回到了大约一只鸵鸟的体重档位。
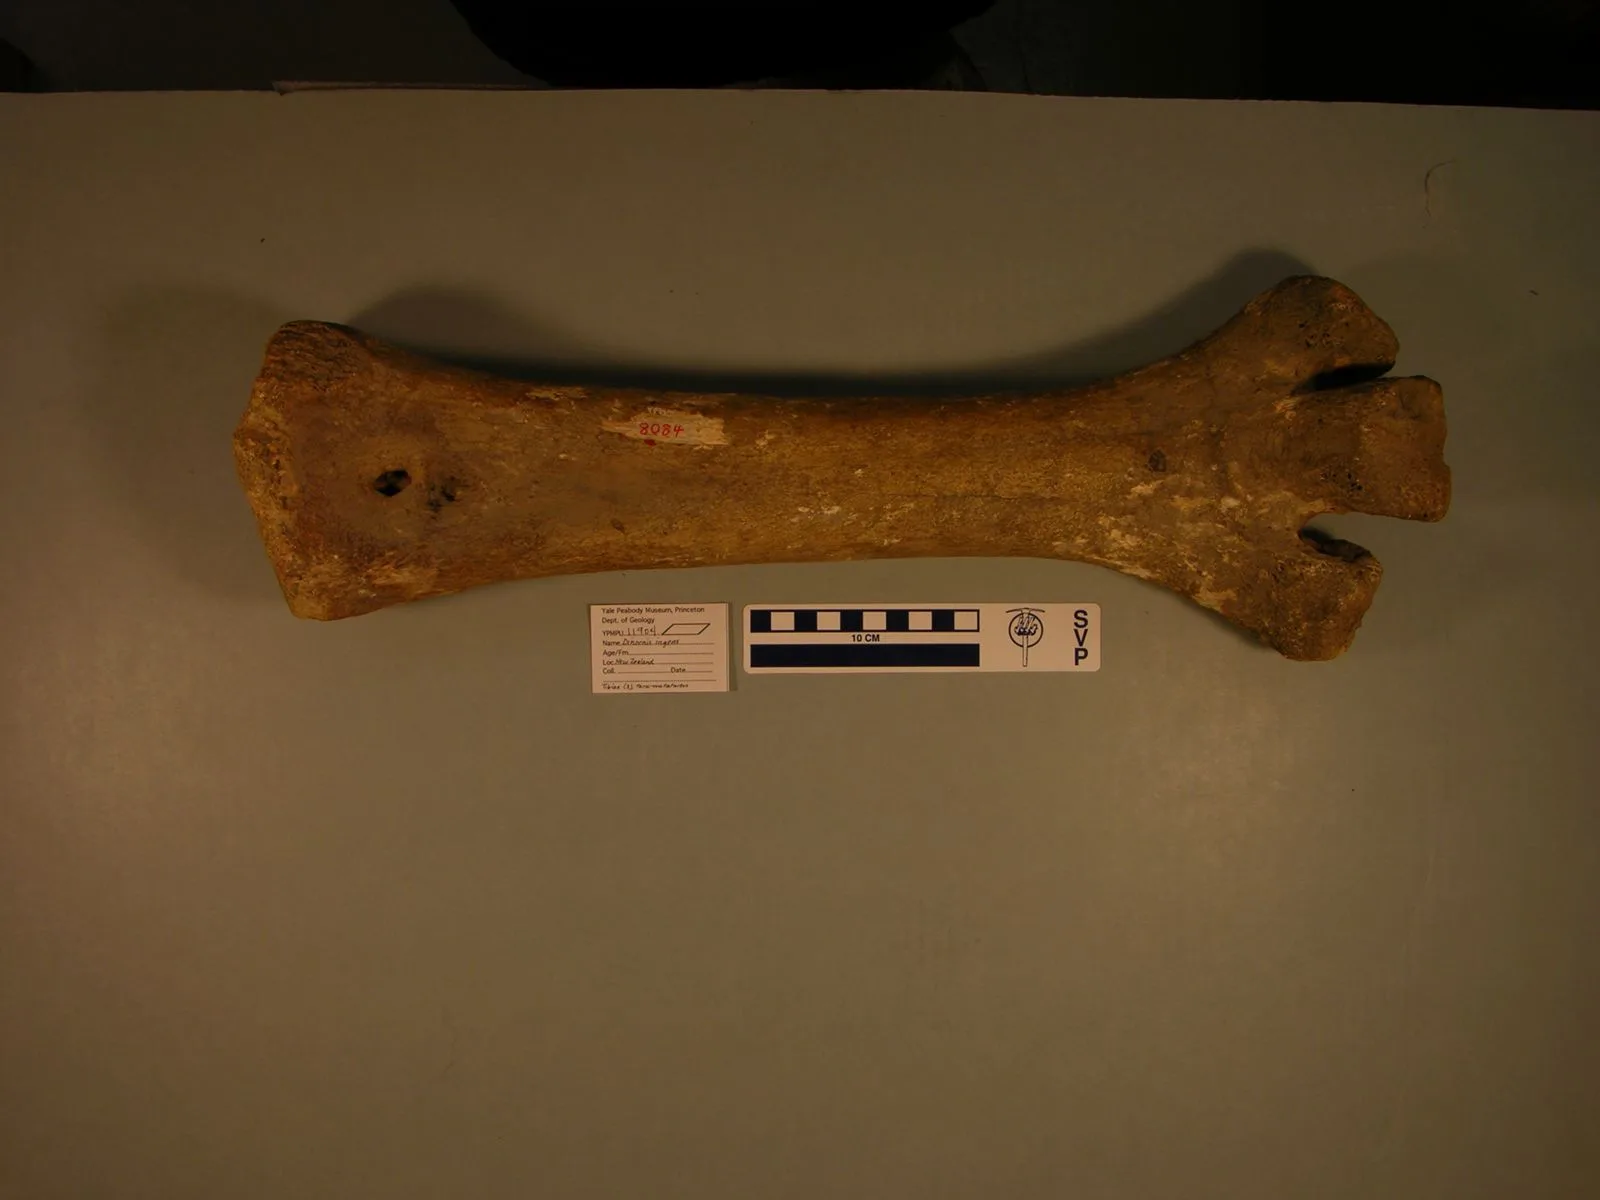
Dinornis的股骨正模(YPM VPPU011):骨干在中段收窄、两端关节头膨大,整体看上去纤细——这正是2013年CT数据重新确认的那一体型特征;下方附10厘米比例尺(耶鲁大学皮博迪博物馆藏,CC0)
腿骨不粗,剩下的解释只有一个:它靠细长的腿骨撑起巨大身体。研究者把这些骨骼放进有限元分析——一种用计算机模拟骨骼受力的“虚拟碰撞测试”,假想它承受整个身体的重量,施加到不同角度,看骨骼内部的应力分布。结果出现了一个反直觉的场景:它的小腿承受的应力,是所有被测平胸鸟中最高的,而股骨的应力只和现生不飞的鸟相当。
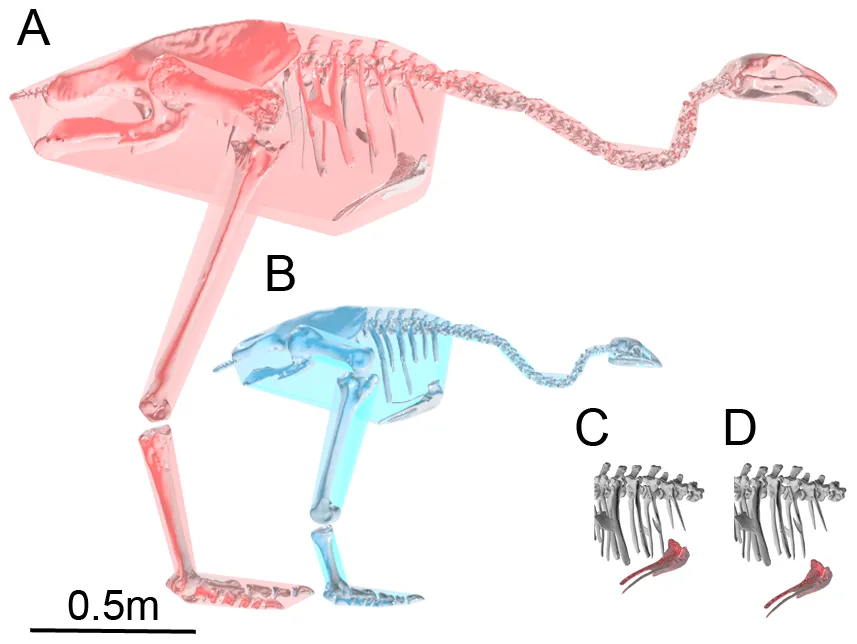
凸包软组织模型与足部骨骼对比:A为南方巨恐鸟(196千克)的凸包模型,B为厚足恐鸟(50千克)在同一尺度下的凸包模型;C、D分别为两者足部骨骼,红色标出南方巨恐鸟的跗跗部与趾骨,蓝色标出厚足恐鸟的对应部位——体重更大的一方,腿骨反而更细(Brassey等2013年论文图版,CC BY,非商业引用)
把厚足恐鸟和它放在一起看,就是两种不同的应对方案。厚足恐鸟走加粗路线:腿骨短粗,股骨应力最低,代价是体重上限被锁死在50千克。南方巨恐鸟走拉长路线:股骨细长,把体重负担转移到了小腿和脚趾,靠加大承压面积化解应力。两个科在约527万年前分化,各自解决了同一个难题:一个把骨头加粗,一个把骨头拉长,答案却完全不同。
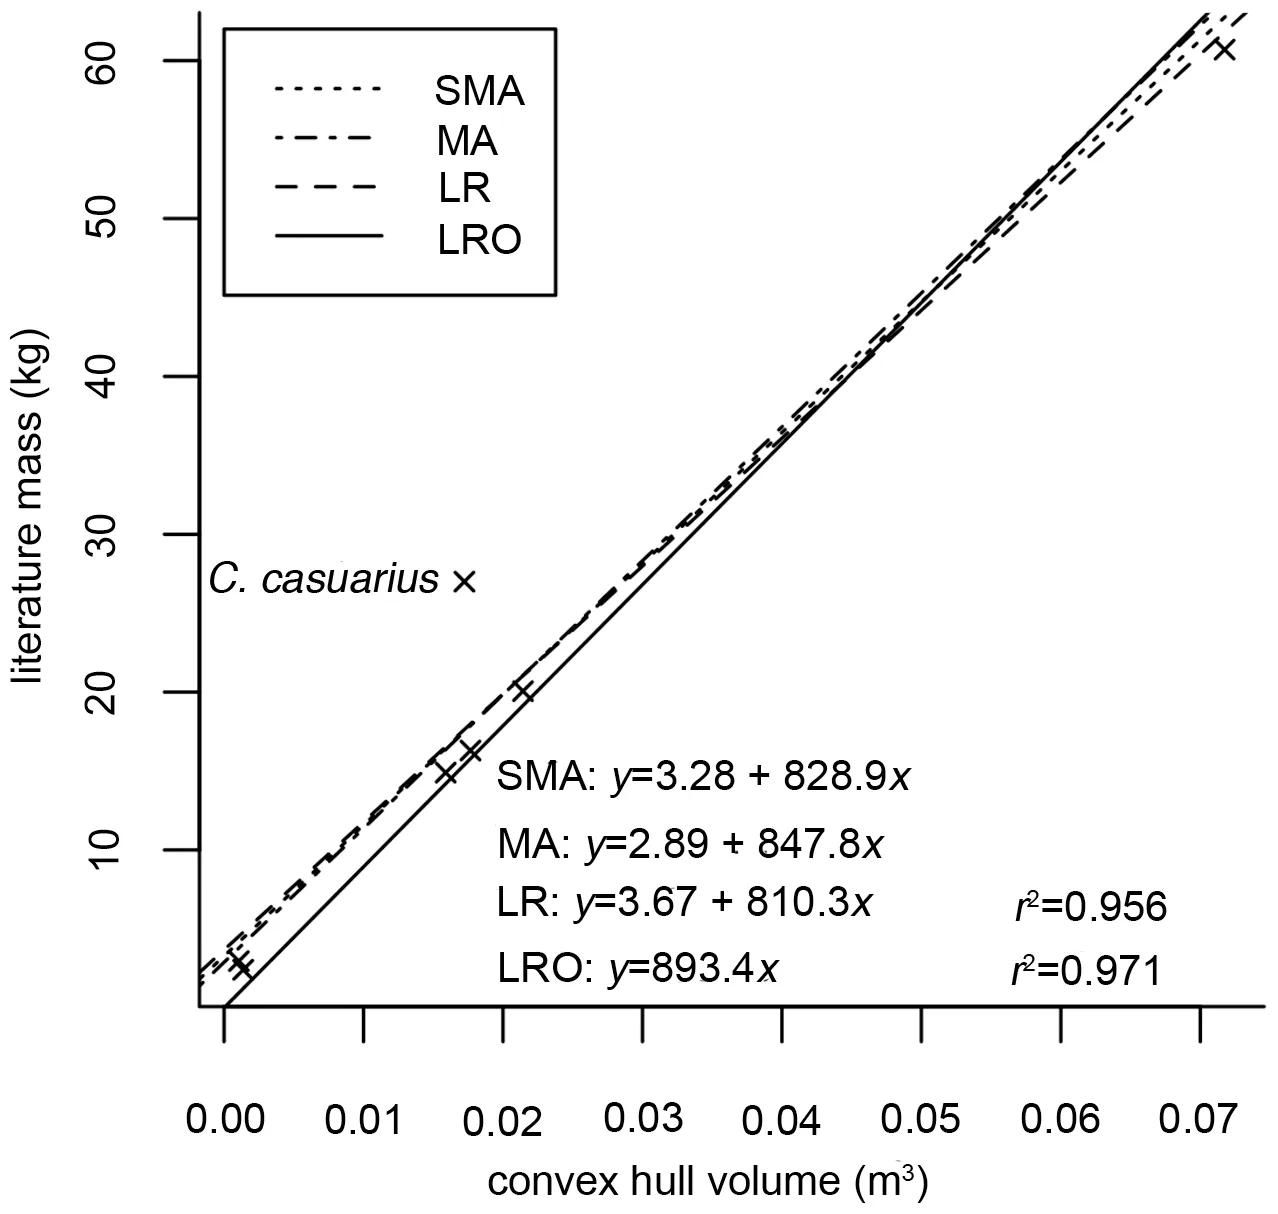
凸包体积法的可靠性验证:以现生食火鸡为样本,横轴为CT扫描得到的凸包体积,纵轴为文献记载的体重,四条回归线分别对应不同体重方程;相关系数达到0.956与0.971,说明这套换算在现生鸟上站得住(Brassey等2013年论文图版,CC BY,非商业引用)
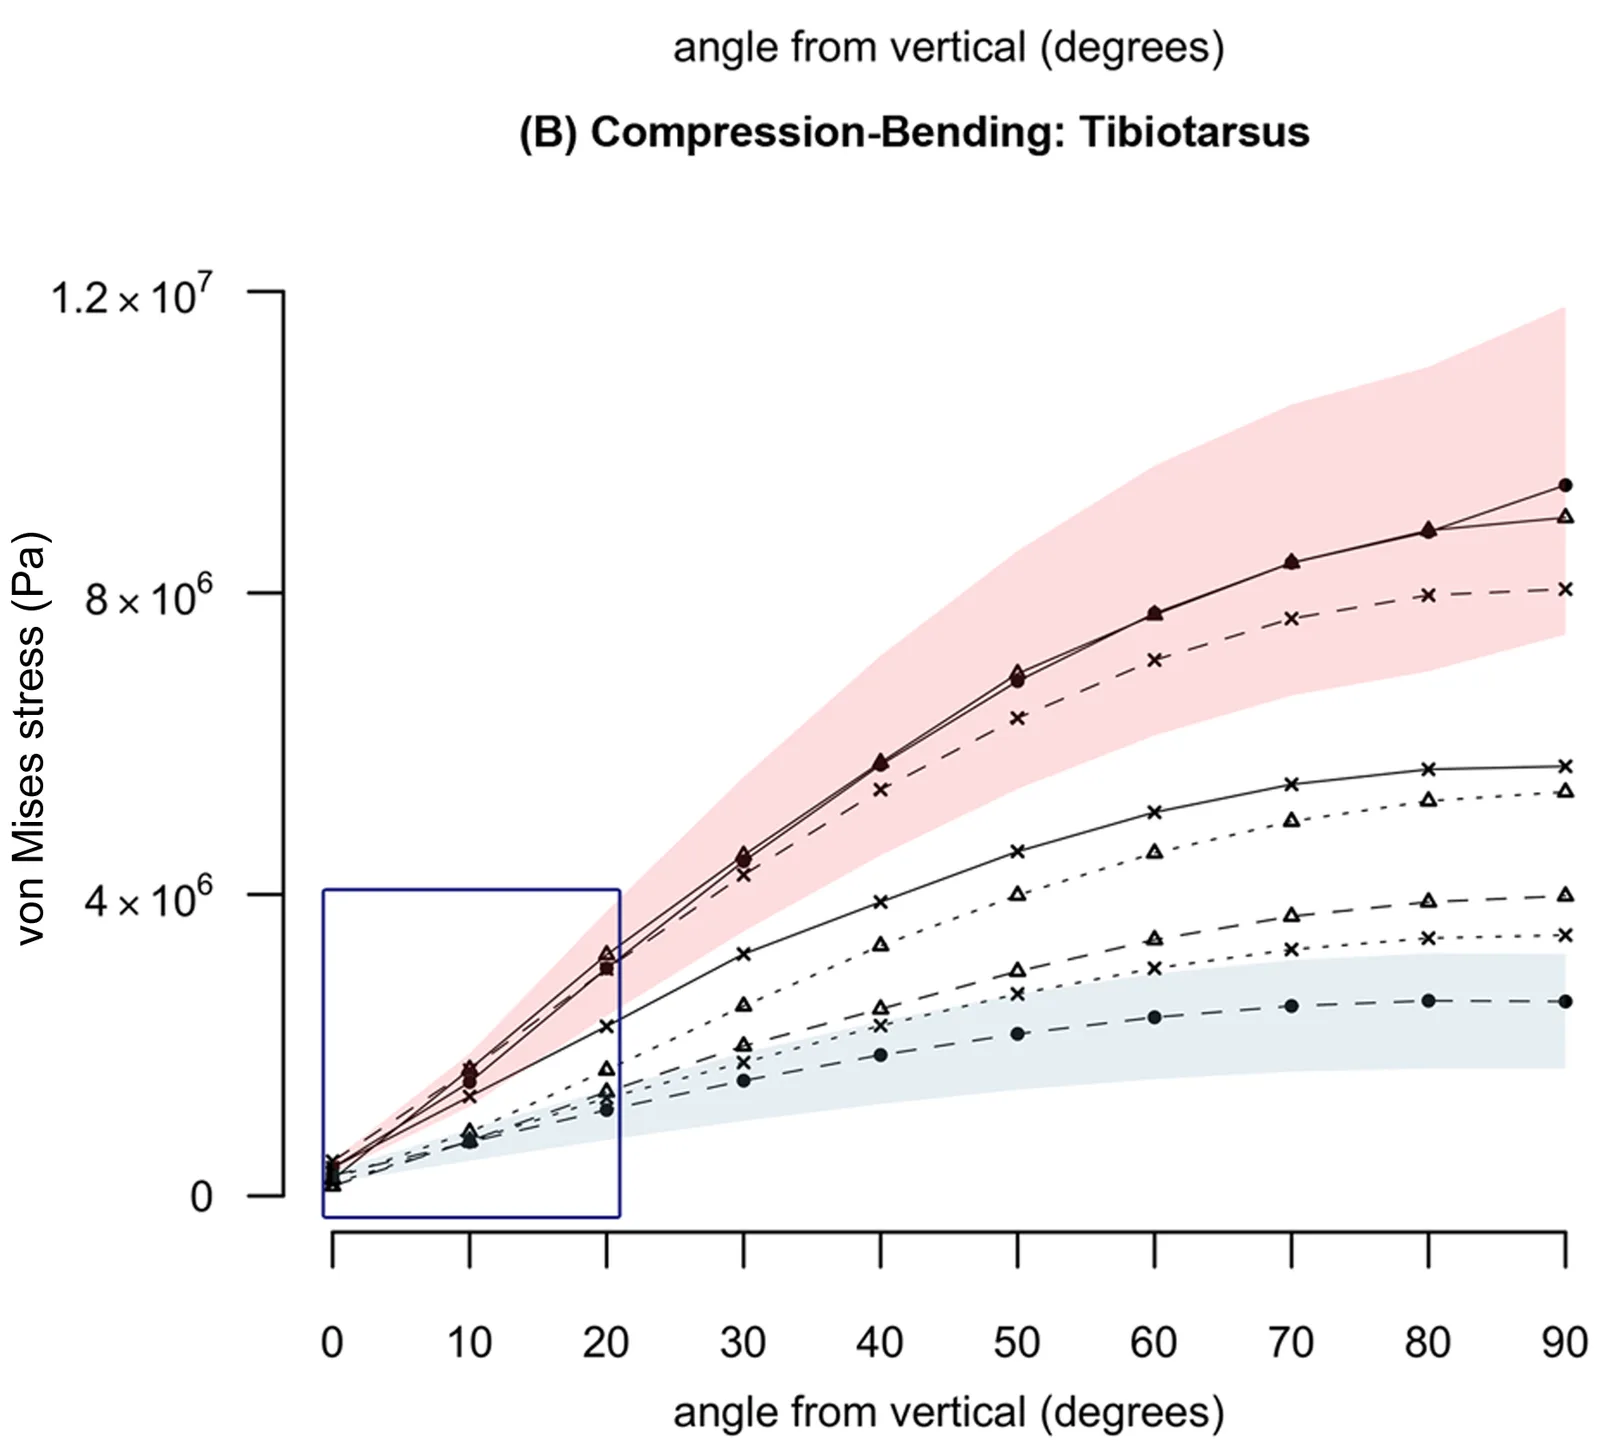
有限元分析结果(B面板,胫跗骨):横轴为骨骼与垂直方向的夹角(0–90度),纵轴为von Mises应力。粉色带上缘为南方巨恐鸟,蓝色带下缘为厚足恐鸟,两者之间依次夹着哈斯特鹰、现生鸵鸟、鸸鹋等现生鸟的曲线。同一角度下南方巨恐鸟胫跗骨承受的应力最高,厚足恐鸟最低;左下蓝框为0–20度区间的放大细节(Brassey等2013年论文图版,CC BY,非商业引用)
恐鸟的食谱其实是较为丰富多样的。2013年,研究者分析了同一处岩洞里的51份粪化石,其中包含4个同时生活在当地的恐鸟种。提取出的花粉、植子宏观化石与植物古DNA显示,它们的食谱里既有草本也有低矮灌木,而且同一地层里不同物种之间的食性差异,小于不同栖息地之间的差异。也就是说,把这些物种分开的并不是口味上的偏好,而是各自占据的住处不同。
在人类的干扰下,恐鸟的生态位能维持多久,最终取决于它们的繁殖速度。恐鸟属于典型的K选择型鸟类,生长曲线显示个体要到十岁左右才达到成年体型,繁殖率低、每窝后代数量也少。慢生意味着种群一旦被大量捕杀就很难补回来:人们从地里拿走的每一只成鸟,都要很多年才能有同等数量的新生个体接上。这正是它们容易因猎杀而彻底凋亡的另一个原因,也是评估灭绝速度时最容易被忽略的因素之一。
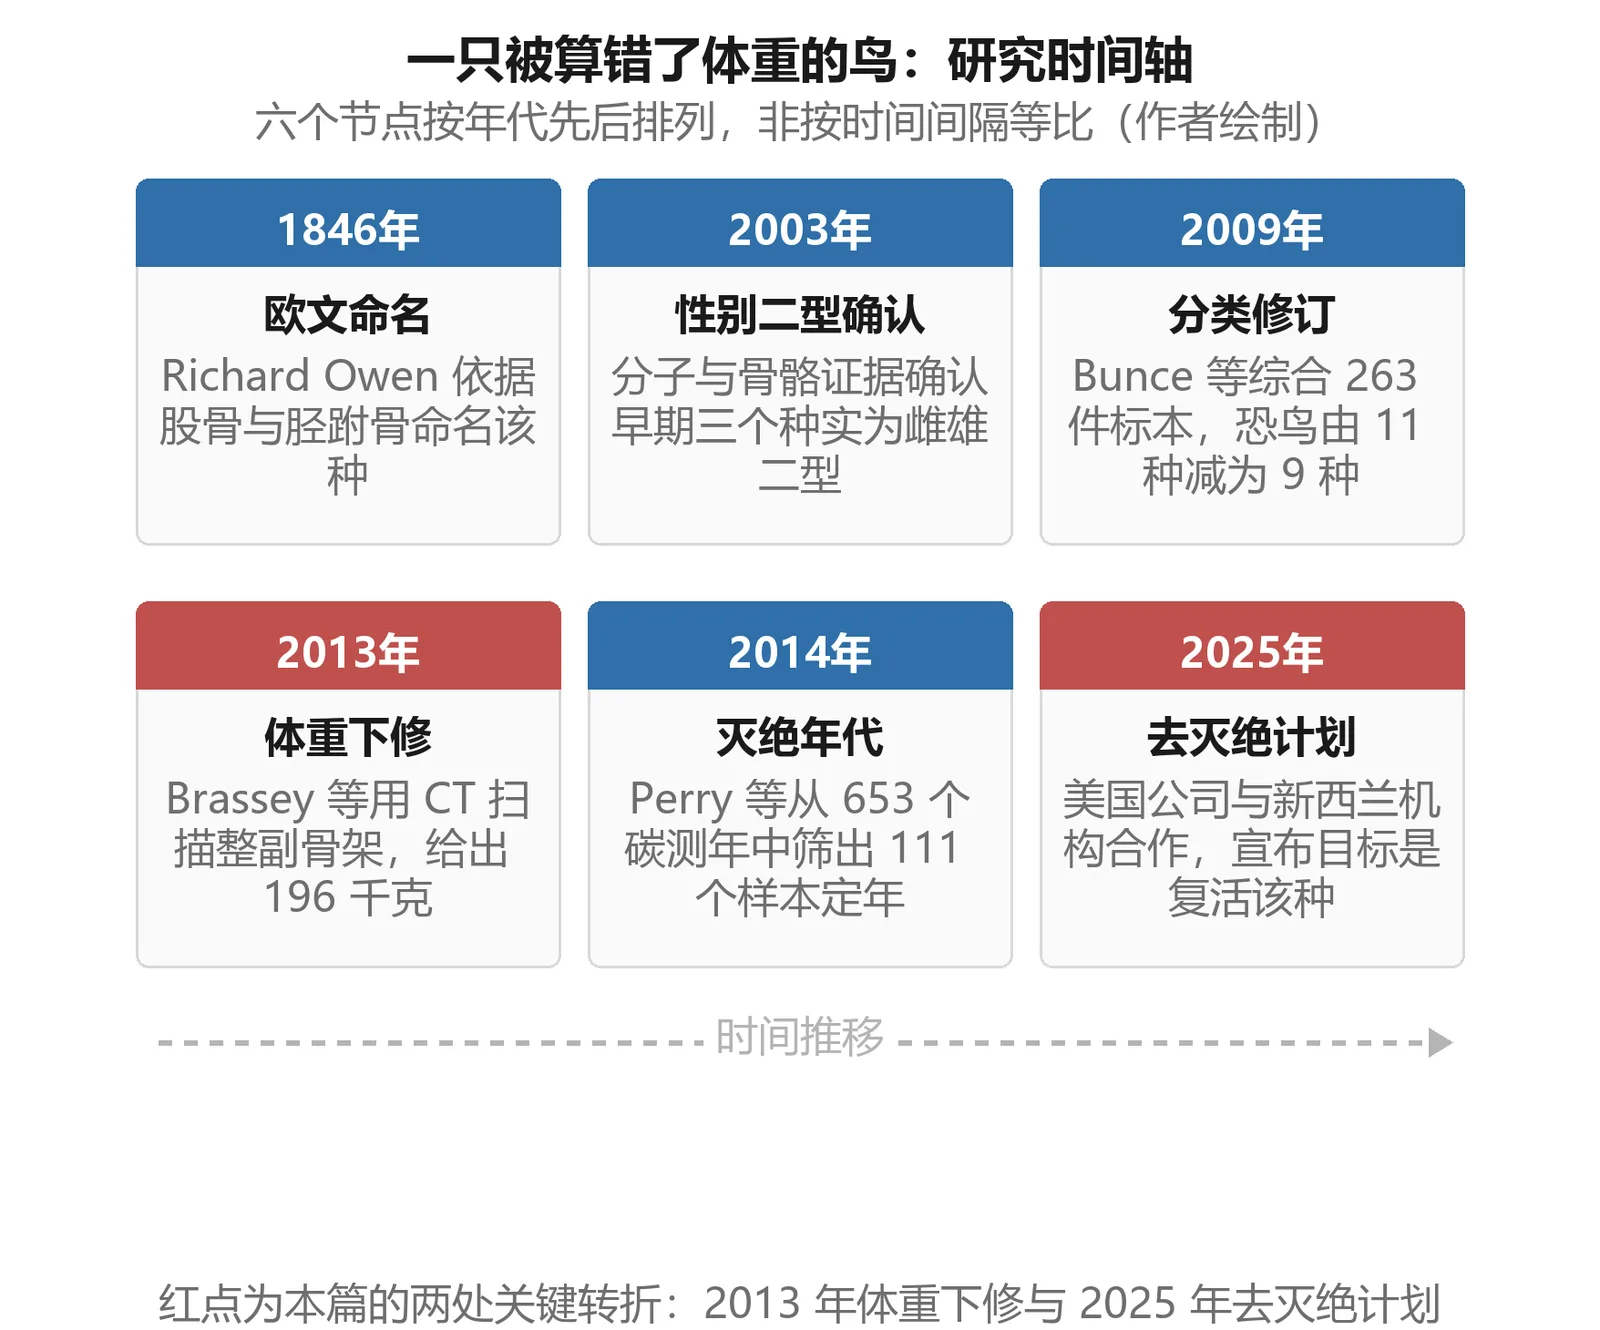
南方巨恐鸟研究时间轴:1846年欧文命名、2003年确认性别二型、2009年分类修订(11种减为9种)、2013年CT体重下修、2014年灭绝年代确定、2025年去灭绝计划公布。六个节点按年代先后排列,非按时间间隔等比;红色标出的两项是本篇的两处关键转折(作者绘制)
真正让人意外的是它的蛋。凯科拉附近出土过一枚近乎完整的恐鸟蛋,长240毫米、宽178毫米,是全世界最大的恐鸟蛋。这枚蛋在1850年代从一处毛利墓穴里挖出来,窄端被人钻孔做成盛水器具,之后又漂洋过海拍卖过几轮。更麻烦的是,这枚蛋的壳只有1毫米厚。一枚由两百多千克的鸟产下的蛋,壳薄到这种程度,几乎没有缓冲的余地。
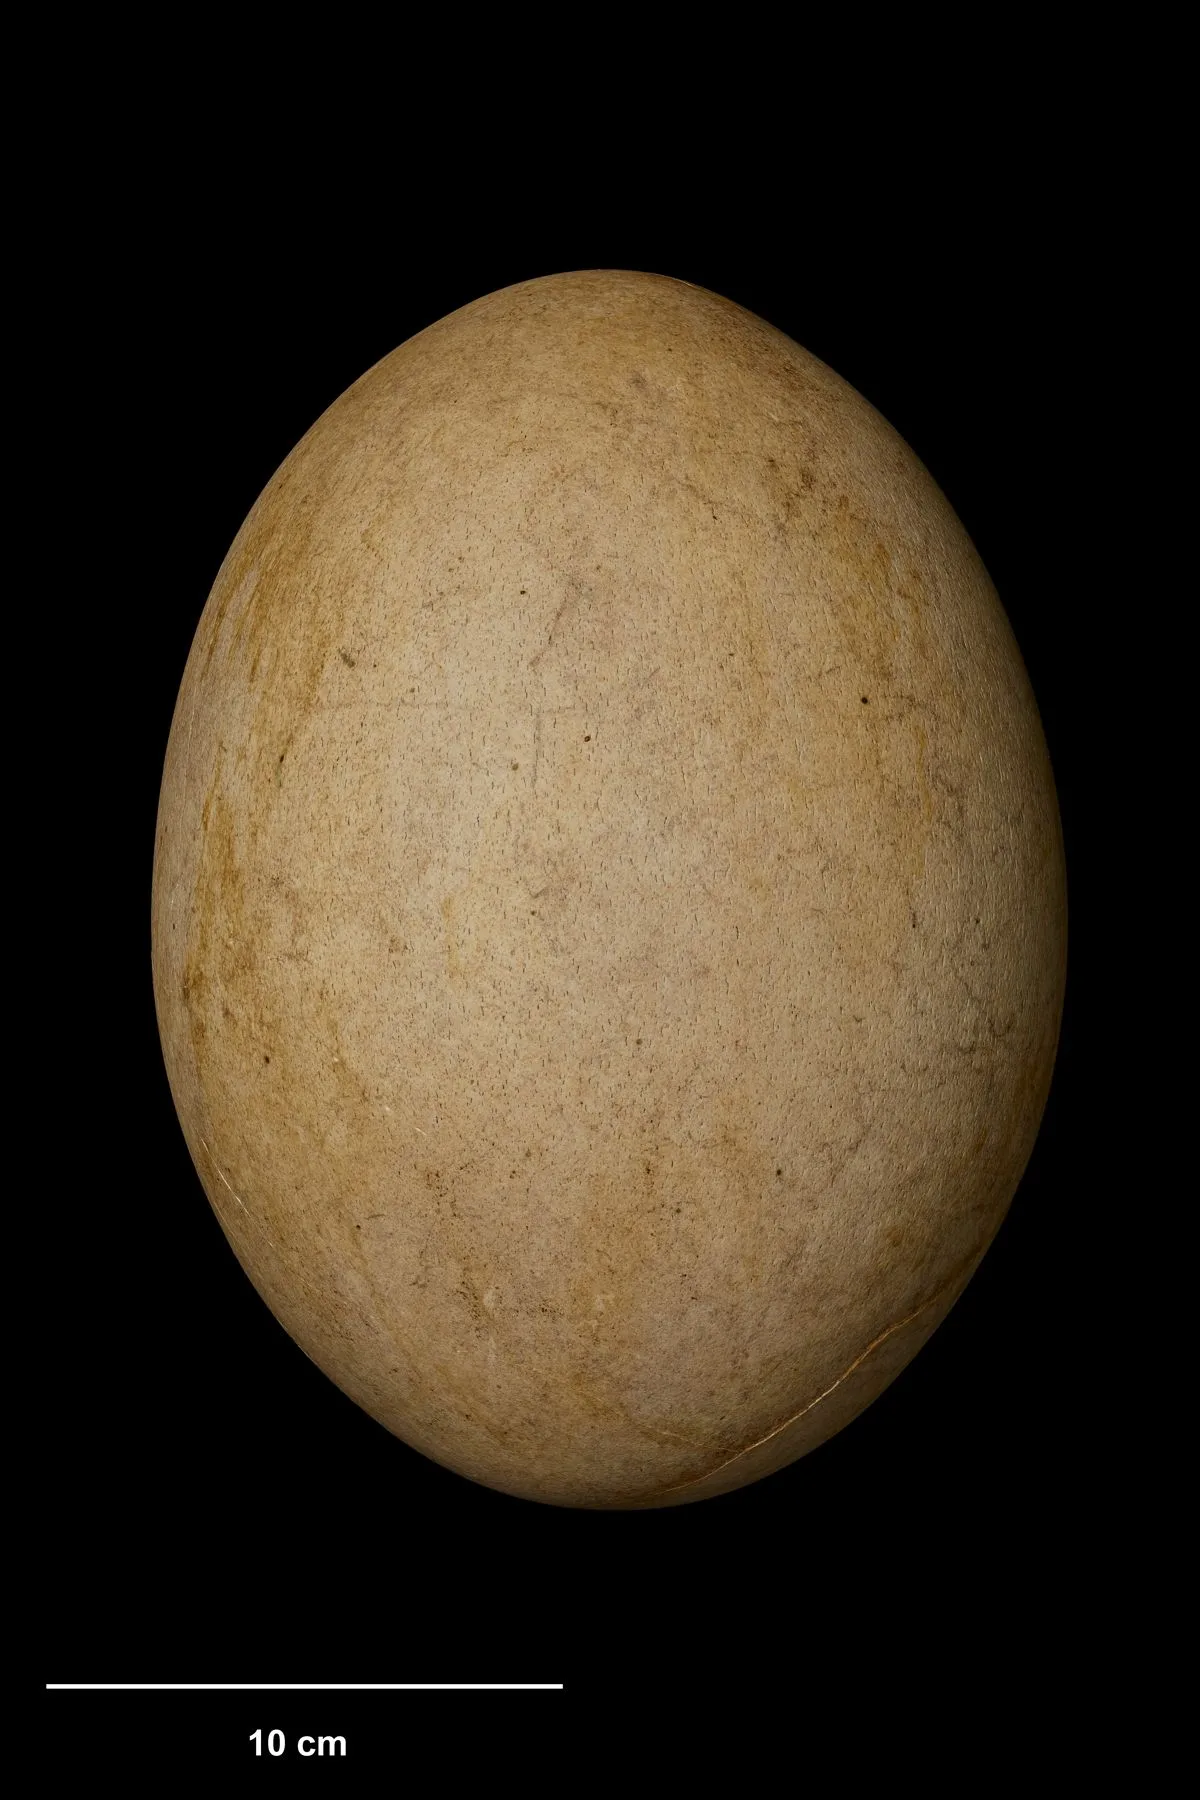
凯科拉巨蛋(KAIKŌURA EGG,ME12748)的整蛋照片:长240毫米、宽178毫米,是全世界最大的恐鸟蛋,1850年代出土于新西兰凯科拉的一处毛利墓穴,蛋壳窄端曾被人钻孔做成盛水器具;下方附10厘米比例尺(新西兰国家博物馆Te Papa Tongarewa藏,非商业引用)
恐鸟的孵蛋工作是怎样分工的?2010年一篇论文给出了答案。研究者从恐鸟蛋壳的内外侧都提取到了DNA,其中外侧检出的序列属于雄性个体。考虑到恐鸟雌性比雄性重得多,重量可能相差近三倍,最合理的推测是孵蛋主要由雄鸟承担,就像鸵鸟和鸸鹋那样。即便如此,一位生态学家仍算过一笔账:在全世界三千多种鸟里,恐鸟蛋的破损概率最高,是最容易碎的。
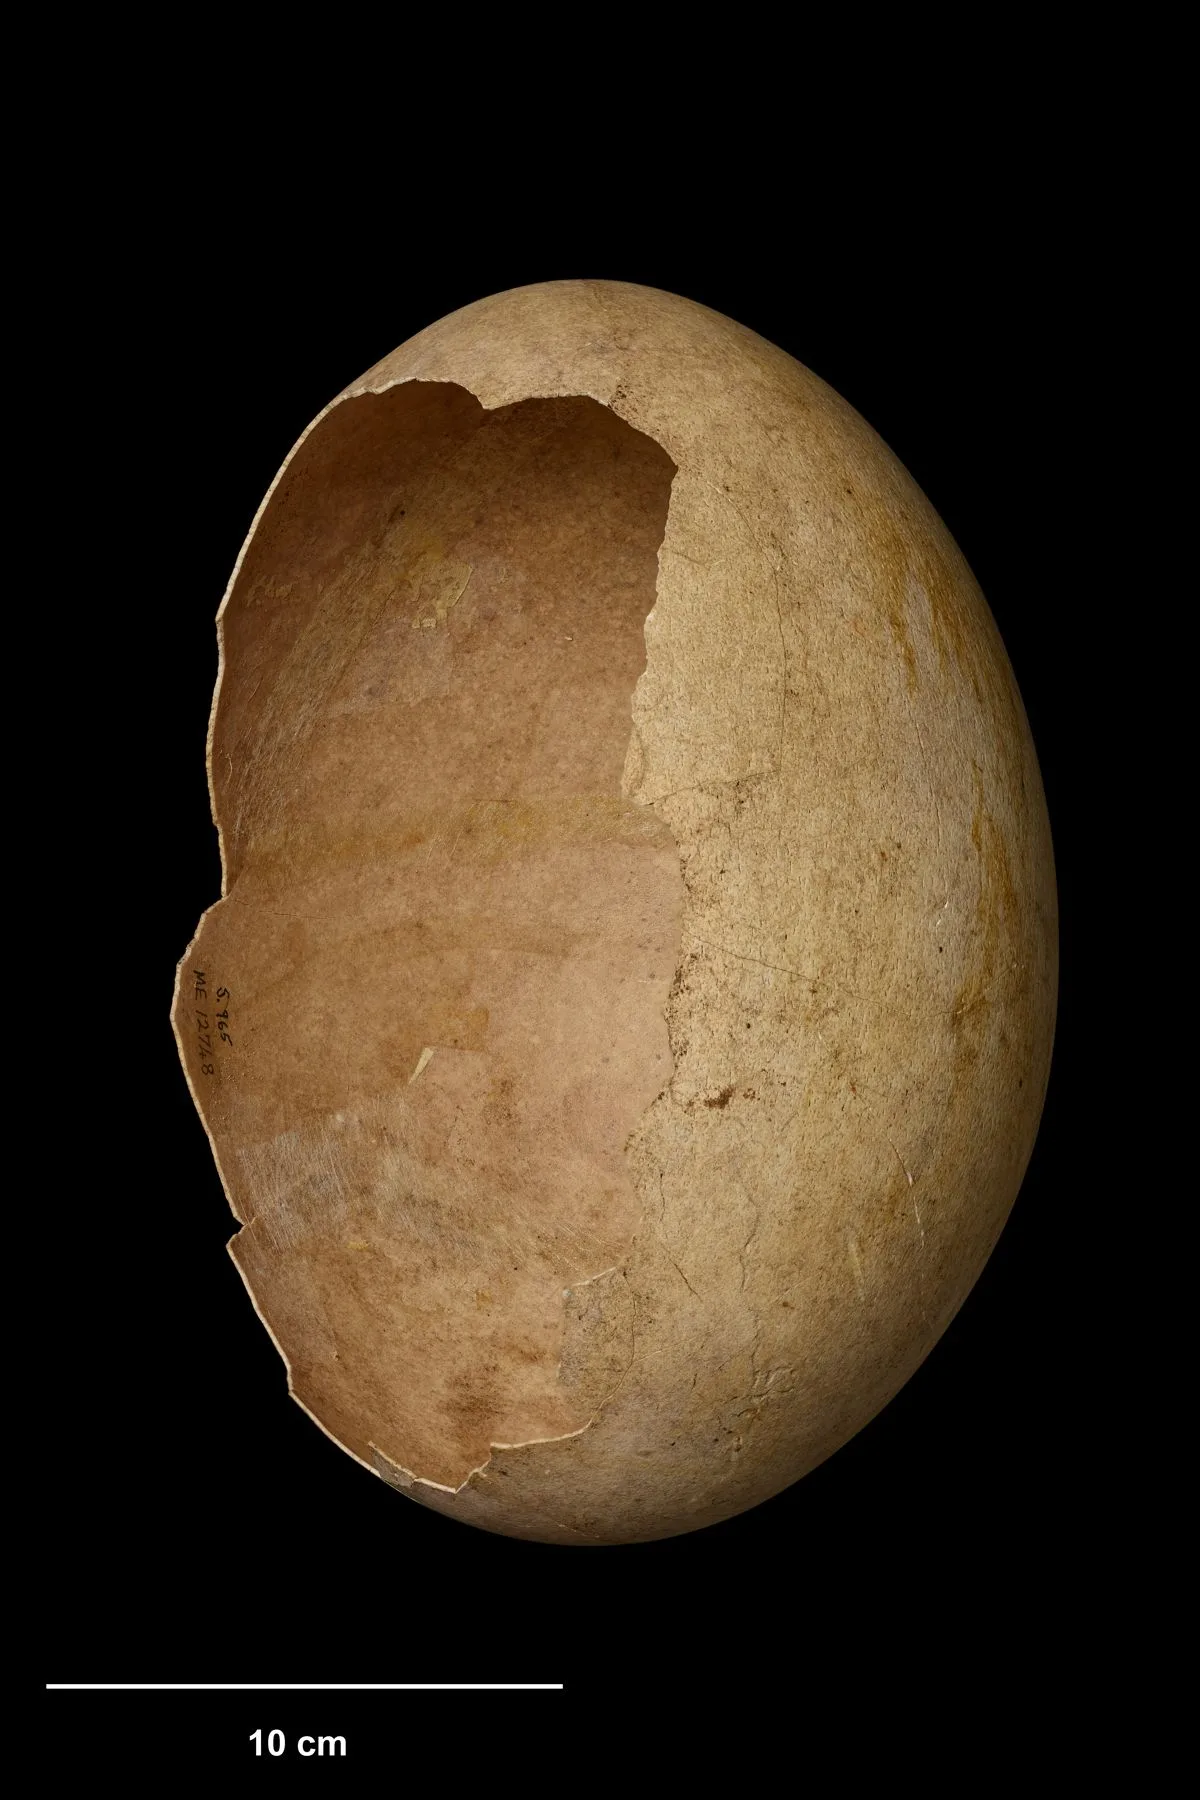
同一枚蛋的内侧面:左侧大半已破碎剥落,露出壳的内壁与断面厚度,可据此估出这层壳只有约1毫米——放在两只手掌上都嫌薄。图中编号为出土时的原始标签,下方附10厘米比例尺(新西兰国家博物馆Te Papa Tongarewa藏,非商业引用)
恐鸟灭绝的速度快得超出想象。2014年,一项研究从653个碳测年结果中挑出111个高质量样本,用概率见sightings模型做统计推断。结论是:毛利人约在13世纪中叶登陆,恐鸟在最初的约150年里就已经“经济灭绝”,剩下的少量个体零星可见;大约200年后,最后一只在1440到1445年之间消失。要让这样一座鸟群在两代人的时间里消失,平均每人每年猎5只就够了。
恐鸟并不只分布在一种环境里。南方巨恐鸟主要见于南岛的低地,从灌丛、沙丘地到草地和林缘都能找到它的踪迹,史前材料也见于斯图尔特岛一带。在这些地方,它占据的正是新西兰生态里长期空缺的那一格:在这个岛上没有任何一种原生陆生食草动物,能够同时处理高处的枝叶和粗糙的纤维,而恐鸟既吃得到高处,也消化得了低处的粗草。
2025年7月,一家复活恐狼的美国公司宣布与新西兰的Ngāi Tahu机构合作,把南方巨恐鸟带回来。消息公布后,最常见的评价是:这不可能。一位古生物学者直言这是“白日梦”,顶多是基因改造的鸸鹋;另一位说得更直接——灭绝就是永远的灭绝。该项目列出的进度是3.6米、230千克,计划5到10年内出雏。这个数字用的是二十年前的旧估计,而引发该复活项目设想的那篇论文,早已将恐鸟的体重估算从230千克改成了196千克。
参考资料
- [1] Brassey R., Brummitt S. J., Taylor M. P., et al. More than One Way of Being a Moa: Differences in Leg Bone Robustness Map Divergent Evolutionary Trajectories in Dinornithidae and Emeidae (Dinornithiformes). PLOS ONE, 2013, 8(11): e82668. 开放获取(CC BY4.0) https://doi.org/10.1371/journal.pone.0082668
- [2] Perry G. L. W., Wheeler J., Wood J. R., Wilmshurst J. M. New Zealand's extinct giant moa (Dinornis) and the case of the exploding anthropogenic overexploitation hypothesis. Quaternary Science Reviews, 2014, 105: 126-135. https://doi.org/10.1016/j.quascirev.2014.09.025
- [3] Bunce M. E., Trewby S. J., Baker A. J., et al. Resolution of the phylogenetic relationships of moa (Aves: Dinornithiformes). Proceedings of the National Academy of Sciences, 2009, 106(49): 20646-20651. https://doi.org/10.1073/pnas.0906660106
- [4] Huynen L., Parkinson F., Moorhouse R. K., et al. Ancient DNA reveals extreme egg morphology and nesting behavior in New Zealand's extinct moa. Proceedings of the National Academy of Sciences, 2010, 107(37): 18637-18642. https://doi.org/10.1073/pnas.0914096107
- [5] Wood J. R., Wilmshurst J. M., Richardson S. J., et al. Resolving lost herbivore community structure using coprolites of four sympatric moa species. Proceedings of the National Academy of Sciences, 2013, 110(42): 16261-16266. https://doi.org/10.1073/pnas.1307700110
- [6] Museum of New Zealand Te Papa Tongarewa. KAIKŌURA EGG (ME12748) 藏品记录,标本尺寸240 × 178mm。 https://collections.tepapa.govt.nz/object/55754
- 配图来源:Brassey等2013年PLOS ONE论文图版(CT扫描渲染图、凸包软组织模型、食火鸡体重回归图、有限元应力云图与应力—角度曲线),该文以CC BY许可发表,此处作非商业科普引用并已署名;南方巨恐鸟头骨照片(Dinornis maximus,YPM VP00920)与股骨正模照片(Dinornis ingens,YPM VPPU011)取自耶鲁大学皮博迪博物馆藏品影像,CC0公共领域贡献,非商业引用;凯科拉巨蛋照片(KAIKŌURA EGG,ME12748,240×178毫米)及蛋壳微距照片取自新西兰国家博物馆Te Papa Tongarewa藏品影像,非商业引用;体型负重反差对比图与研究时间轴均由作者绘制,依据Brassey等2013年、Bunce等2009年与Perry等2014年论文数据。