Appearance
北方巨恐鸟:靠嗅觉找食的岛上巨人
1831年到1836年之间,新西兰海岸一带陆续出土了一批15厘米长的碎骨。在当时的人看来,这只是又一批巨型鸟类的腿骨碎片;送进伦敦的标本里,只有一块被留了下来,供理查德·欧文研究。欧文此前从未见过完整的恐鸟化石,他凭借这一小块碎片上的关节面形态,断定这属于一种不会飞的巨型鸟类,并在1843年为它命名。这块碎片后来被鉴定为北方巨恐鸟的肢骨,而它所属的整个类群,由此走进了现代生物学。
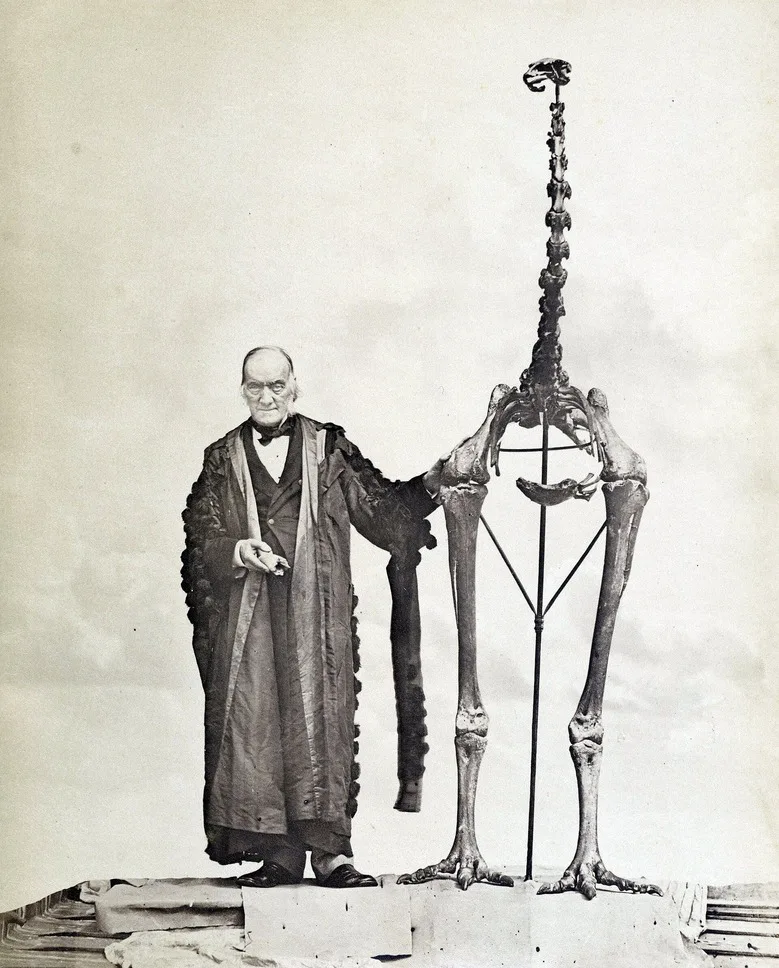
图1 理查德·欧文与巨恐鸟属骨架的历史合影,摄于19世纪。欧文仅凭一块15厘米长的肢骨碎片就预言出这一类巨型鸟类。图为公有领域素材,已作比例裁切。 图片来源:Wikimedia Commons,公有领域。https://commons.wikimedia.org/wiki/File:Dinornis1387.jpg
北方巨恐鸟(Dinornis novaezealandiae)属于恐鸟目、恐鸟科、巨恐鸟属。属名Dinornis来自古希腊语,前一半deinós意为可怕的,后一半órnis意为鸟类,合起来是可怕的鸟。种加词novaezealandiae则是拉丁语的新西兰的属格形式。它的中文名取自化石出土地在北岛,并非来自种加词——这个属里还有另一个物种,住在南岛,叫南方巨恐鸟。
这个名字的确定过程并不顺利。欧文在命名后的几年内又多次修订,先后给同一类材料安上giganteus、struthoides、ingens等名称;雷兴巴赫在1850年提出过Moa与Movia两个属名;格雷在1855年用过Owenia;赫顿在1891年提出过Tylopteryx,把种加词struthoides挂在上面。奥利弗在1930年厘定了有效的属名,此后北岛和南岛这两个大族群才被正式拆成两个物种。
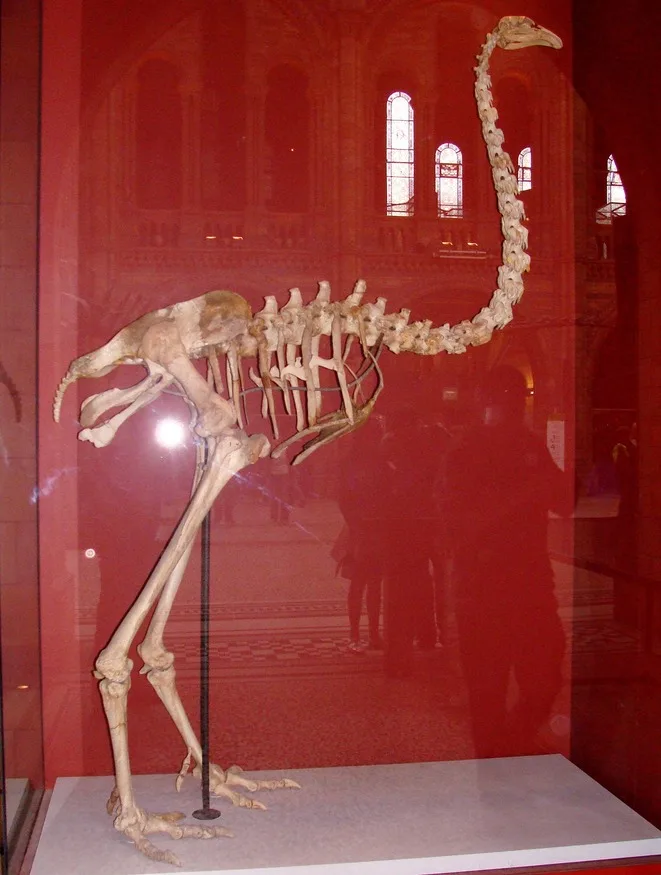
图2 巨恐鸟属完整装架标本,可见S形长颈、无龙骨突的胸骨、退化的翼骨与粗壮的三趾足。注意其背部高度与伸直颈部后的高度差。 图片来源:Natural History Museum, London,CC-BY-4.0,经Wikimedia Commons获取。https://commons.wikimedia.org/wiki/File:Dinornis_novaezealandiae.001_—_Natural_History_Museum_of_London.jpg
北方巨恐鸟的体量在九个恐鸟属里排第二。它站立时背部高度约2米,把颈部完全伸直可达3米,体重上界接近250千克。这个数字来自关节骨尺寸算法的估算,而不是直接称重——亚化石从未被完整称量过。同一套算法给出的结论是:它比南岛的同属个体略小一些。换句话说,在站立高度这项指标上,它是这个属里最接近极限的一个。这里需要留一分谨慎:3米是颈部伸直状态下的高度,若按行走时略微前倾的姿势计算,实际数字会低一些。
真正让它出名的是雌雄之间的差距。雌性成鸟大约比雄性成鸟高50%、重280%,这个比例在鸟类和陆生哺乳动物里都找不到先例。换算下来,最重的雌鸟可以达到最轻的雄鸟的近3倍体重。算法把成年雄鸟体重估到55 - 88公斤,雌鸟体重跨度则为夸张的78 - 249公斤。同一段骨头上算出的性别差异,比两个物种之间的差异还要大。
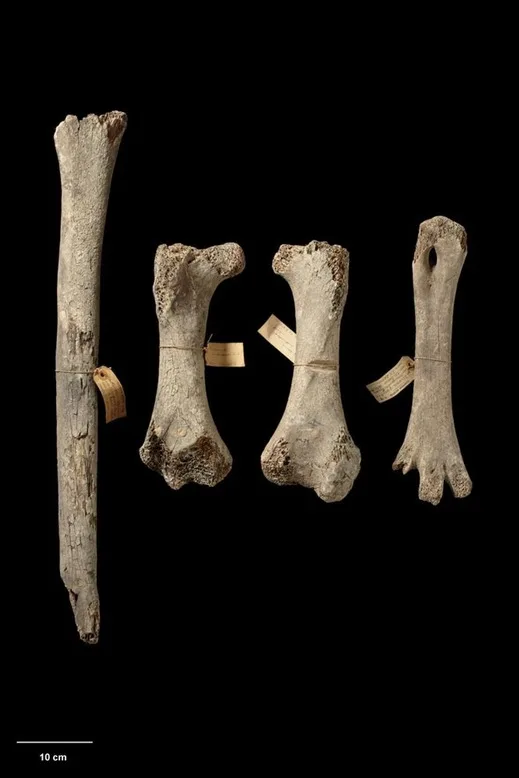
图3 Te Papa馆藏的北方巨恐鸟肢骨与跗跖骨标本(登录号S.000079),采自Maungaraki Range。黑底加10厘米比例尺。这类肢骨是性别与体型估算的主要依据。 图片来源:Museum of New Zealand Te Papa Tongarewa,CC-BY-NC-ND-4.0。https://collections.tepapa.govt.nz/object/253137
造成这种悬殊的机制,材料里留下了两条线索。一条是年龄:恐鸟的长骨生长速度远慢于鸵鸟等现生大型涉禽,这意味着雌鸟的体型优势需要更长时间积累。另一条是栖息地:低地镶嵌灌丛里的种群,比高地封闭森林里的种群明显更大。也就是说,同一个物种内部,体型还会随环境再次分化。把性别与环境两层因素叠在一起,才得到那个3倍的极值。
头部解剖提供了另一条不太起眼却很重要的线索:它的大脑嗅叶异常发达,据此研究者认为它拥有灵敏的嗅觉。这一点与现生鸟类形成鲜明对照——绝大多数鸟类的嗅觉并不灵敏,而它偏偏属于一个普遍不靠气味觅食的类群。同时,它的腿骨相对更长——在大型恐鸟里,它属于动作更敏捷的一类。更高的枝叶与更宽的觅食范围,正好是这套身体条件能够覆盖的区域。
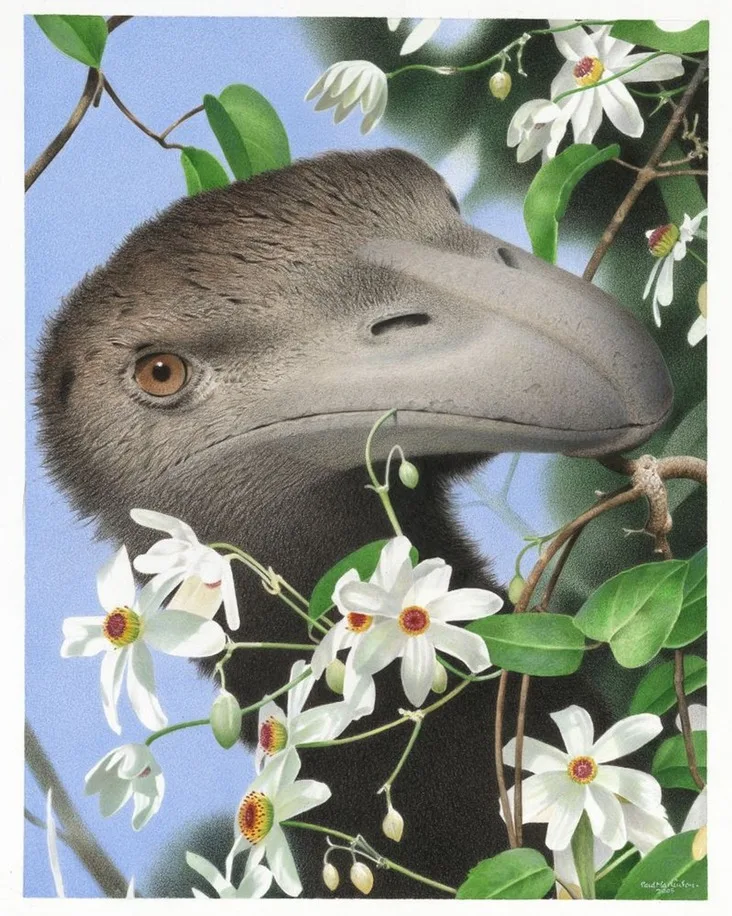
图4 北方巨恐鸟头部复原画,可见相对身体偏小的头骨、扁而略下弯的喙,以及覆盖颈部的毛状羽。喙部形态与其剪枝取叶的食性对应。画面为科学想象,并非照片。 图片来源:Paul Martinson绘,Te Papa出版,CC-BY-NC-ND-4.0。https://collections.tepapa.govt.nz/object/710916
取食装备与它的身材并不相称。头骨相对身体很小,喙部粗壮、扁平,末端略向下弯,属于典型的剪枝取叶形态,而非啄食坚硬种子的形态。化石记录中大量出现砂砾状胃石,说明它靠吞下的砂砾磨碎植物。据此可以判断,它的主食是纤维质枝叶;树、花、浆果、种子都在食谱之内,而草本植物和禾草的摄入相当少。这套食性也解释了它为什么能长到3米——低热量、高纤维的食物需要庞大的消化道,而能支撑庞大消化道的身体,在缺人的岛屿上没有体积上限。
它的分布范围是恐鸟里跨度最宽的一种。从海岸沙丘到内陆灌丛、低地森林,一直到亚高山的草甸与草原,都能找到它的骨骼。在新西兰北岛,从北角一直到惠灵顿的沿海与邻近内陆都有记录,大屏障岛也有。它的骨骼在人类聚落的遗址里大量出现,说明在毛利人到来之前,它是北岛最常见的大型陆生植食动物。骨骼出现频率之高也提供了一个反向指标:一个物种越容易被找到,往往说明它的栖息环境越开阔,而洞穴与岩棚里的堆积则来自更偶然的落入与封存。
它的羽毛属于恐鸟里较为特殊的一类:长而蓬松,呈毛状,最长可达18厘米。根据出土的羽毛与皮肤残留,除小腿下部和头部以及颈部靠上的一小段裸露外,全身都被羽毛覆盖;由于翼部退化并被羽毛掩埋,活着的北方巨恐鸟几乎看不出有翅膀。羽色为褐色,有时带浅色边缘。现存的毛状羽材料足以支持毛状与褐色这两条,但更细的羽色分布目前仍没有分子证据。
关于繁殖,直接证据非常稀少,目前只有一件。在怀托莫附近一处岩棚中,发现过一枚大型白色蛋。蛋壳尺寸约为190毫米乘150毫米,研究者据此估算,新鲜时的重量可能超过3公斤。壳体厚重而脆——这样的蛋极易受损,也意味着亲鸟移动时必须格外小心。孵蛋由谁承担尚无定论;有研究推测由雄鸟完成,但这一点仍缺少能够直接验证的材料。对照它3倍的雌雄体重差距,由体型较小的雄鸟承担孵蛋这一设想并非没有道理,但这仍然属于推测而非结论。
它在距今大约500年前后从新西兰消失,也就是大约15世纪,落在毛利人抵达新西兰之后的时间窗内。同批到达的波利尼西亚犬,可能也参与了对幼鸟的屠戮。主流判断把过度捕猎列为首要原因:它的骨骼在早期聚落的厨房遗址里大量堆积,说明它既是被大量猎取的猎物,也是被优先取食的对象。栖息地改变与环境退化被视为叠加因素,而非独立主因。
这一整套结论是在近二十多年才稳定下来的。2003年,邦斯团队在《自然》上发表了第一组来自灭绝物种的性连锁核序列,指出巨恐鸟属内原本被当作三个物种的形态,在每个岛上实际上只对应一个物种,其中两个“种”各自只包含单一性别的个体。2009年同一团队的工作进一步确定了恐鸟类群内部的谱系关系。北岛这一支,就是今天单独成种的北方巨恐鸟。
北岛巨恐鸟留下的直接遗存集中在骨骼上,这也是它能被研究得如此细致的原因。骨骼材料如今存放在新西兰与英国的多家博物馆中,包括正模标本;羽毛与皮肤残留则数量稀少,蛋壳材料目前只有少数几例。正因如此,它的外形复原中,骨骼支撑的部分相当可靠,羽色与幼体外观的部分则保留着推断成分。分类上的悬案同样如此:网络上流传着十几个同物异名,但哪些确实对应同一物种的同一性别的同一批材料,只有正模标本的逐一比对才能回答。
把这些材料合在一起,北方巨恐鸟的形象可以完整地解译出来。它是北岛一座几乎没有被天敌压制的巨型植食者——在当时的生态系统里,没有其他大型动物能与它争夺同一片林冠。它靠灵敏的嗅觉在林下与灌丛中搜寻,靠砂砾与粗壮的喙处理高纤维的枝叶,靠较长的腿去够别的恐鸟够不到的层次。这套组合在缺人的岛屿上几乎无法被替代,而当人类带着狗进入这片岛屿时,被替代掉的其实是它自己。
参考资料
- https://nzbirdsonline.org.nz/species/north-island-giant-moa[1]North Island giant moa | Kuranui. New Zealand Birds Online
- https://www.nature.com/articles/nature01871[2]Bunce M, Worthy TH, Ford T, et al. Extreme reversed sexual size dimorphism in the extinct New Zealand moa Dinornis. Nature, 2003, 425: 172-175
- https://www.nature.com/articles/nature01838[3]Scofield RP, Lambert DM. Nuclear DNA sequences detect species limits in ancient moa. Nature, 2003, 425: 175-178
- https://www.pnas.org/doi/10.1073/pnas.0906660106[4]Bunce M, Worthy TH, Phillips MJ, et al. The evolutionary history of the extinct ratite moa and New Zealand Neogene paleogeography. PNAS, 2009, 106(49): 20646-20651
- https://doi.org/10.20417/nzjecol.44.3[5]Wilmshurst JM. The diets of moa (Aves: Dinornithiformes). New Zealand Journal of Ecology, 2020, 44(1): 1-21
- https://doi.org/10.1080/03036758.2012.751038[6]Wood JR, Wilmshurst JM. Age of North Island giant moa (Dinornis novaezealandiae) bones found on the forest floor in the Ruahine Range. Journal of the Royal Society of New Zealand, 2013, 43(4): 250-255
- https://collections.tepapa.govt.nz/object/253137[7]North Island Giant Moa, Dinornis novaezealandiae. Museum of New Zealand Te Papa Tongarewa, Collections Online
- https://collections.tepapa.govt.nz/object/710916[8]North Island Giant Moa. Dinornis novaezealandiae, by Paul Martinson. Te Papa Collections Online
- https://commons.wikimedia.org/wiki/Category:Dinornis_novaezealandiae_skeletons[9]Category: Dinornis novaezealandiae skeletons. Wikimedia Commons
- https://recentlyextinctspecies.com/dinornithiformes-moa/dinornis-novaezealandiae[10]Dinornis novaezealandiae Owen, 1843. The World's Recently Extinct, Missing and Rediscovered Taxa
- 配图说明:图1为公有领域历史照片;图2、图3为博物馆藏品照片,分别适用CC-BY-4.0与CC-BY-NC-ND-4.0条款,仅用于本篇非商业科普用途;图4为科学想象画,画面内容为艺术家的复原推测。文中数值为学界常用估算值,部分指标源自关节骨尺寸算法,存在不确定性。