Appearance
远古翔兽:一副松鼠骨架撑起的滑翔纪录
2006年12月14日,英国《自然》杂志在封面位置刊出一篇论文,报告了一件来自内蒙古的哺乳动物化石。这件标本的体量与一只松鼠相当,研究者把它命名为远古翔兽(Volaticotherium antiquum)。它的重要性不在体量,而在一副骨架上保存下来的东西:一张覆盖四肢、密被毛发的翼膜。在论文发表的当时,哺乳动物身上出现滑翔构造的最早记录,来自距今约5100万年的蝙蝠类。远古翔兽把这个纪录提前了至少7000万年。
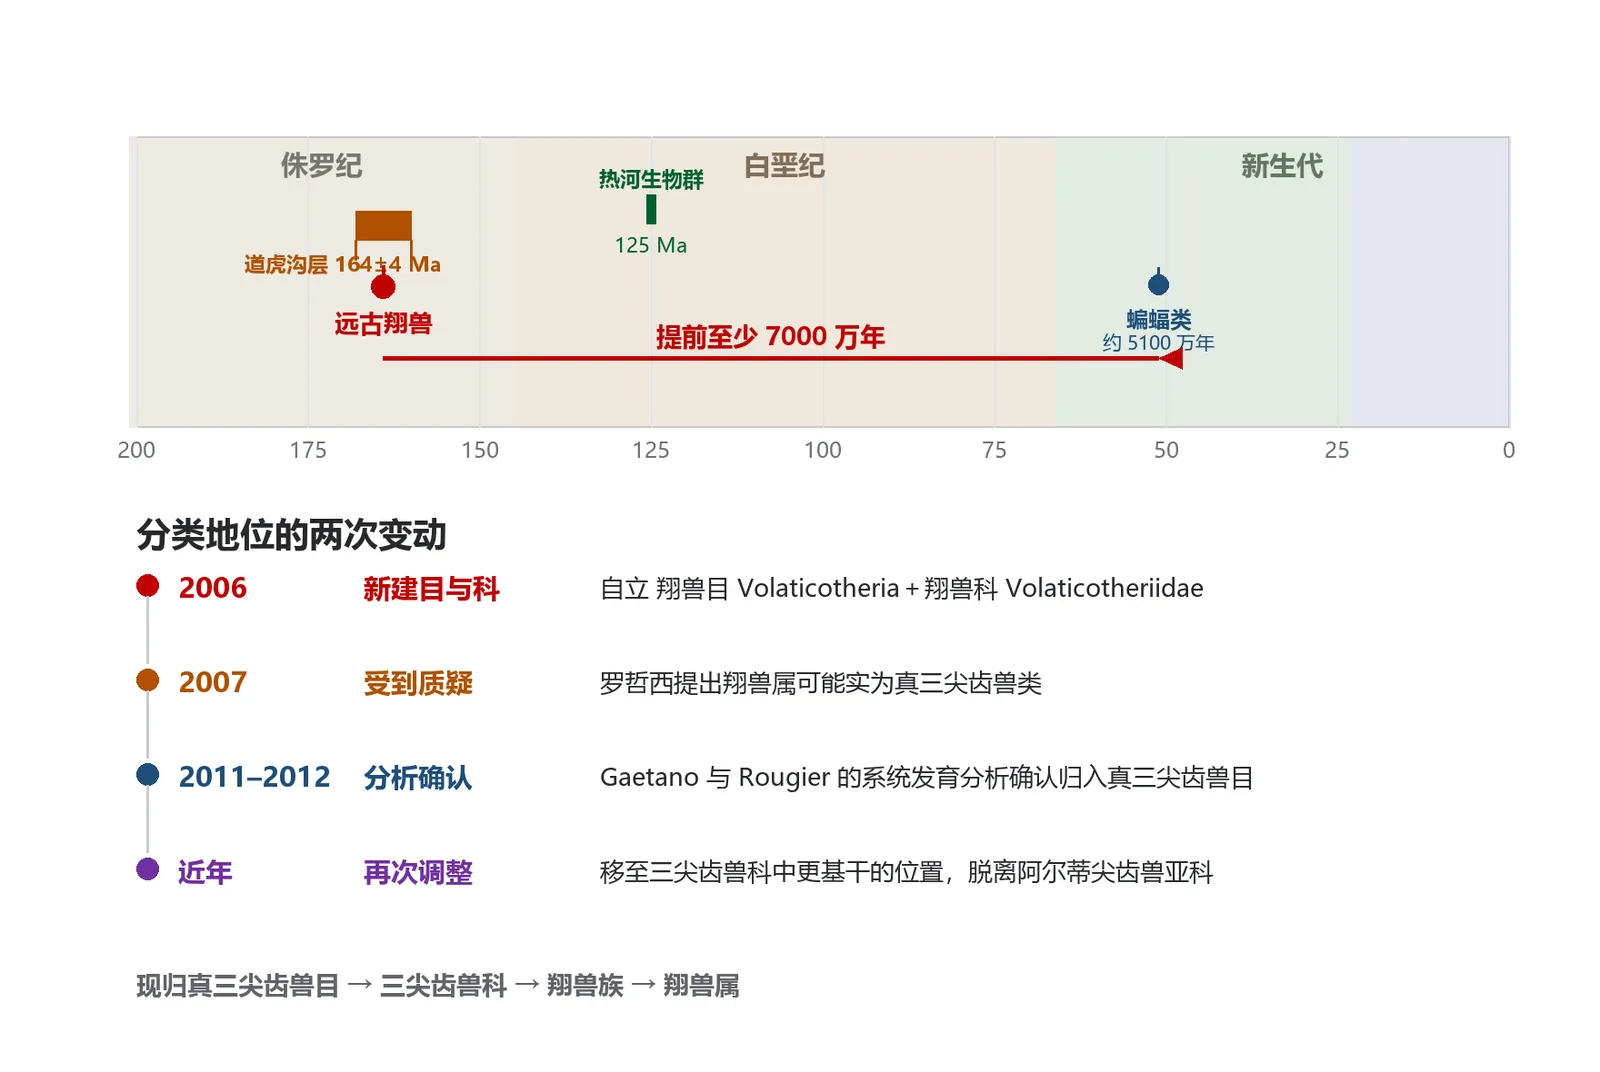
图1 远古翔兽在地质时间轴上的位置,以及其分类地位的两次变动。下半部为该属分类处理被修订的过程。据原始论文与公开文献数据绘制,属示意图。
这个学名可以拆开来看。Volaticus是拉丁语,意为有翅的、会飞的;theri来自希腊语,意为兽;antiquus同样是拉丁语,意为古老的。三个词拼在一起,指向一种古老的滑翔兽。属名里的前缀volati后来被反复借用,凡是给会飞的哺乳动物命名的人,多半都从这里取词。
远古翔兽的骨架是唯一一件已知标本,编号IVPP V14739,现藏中国科学院古脊椎动物与古人类研究所。它的保存状态相当特殊:一具压扁的骨架被封在一块对开石板的正反两面里,而同一块石板上还散布着大量小型甲壳动物的壳瓣——叶肢介(Euestheria)。这块石板是沿层面劈开的,所以骨架的正反两面都留下了痕迹,只是反面的部分区域已经缺失。研究者在显微镜下看到骨架周围有一层薄膜,起初怀疑它属于同一片地层里发现的小翼龙,请来研究小翼龙的汪筱林协助判断,最后排除了这个可能。那层薄膜最终被确认属于这只哺乳动物自己。
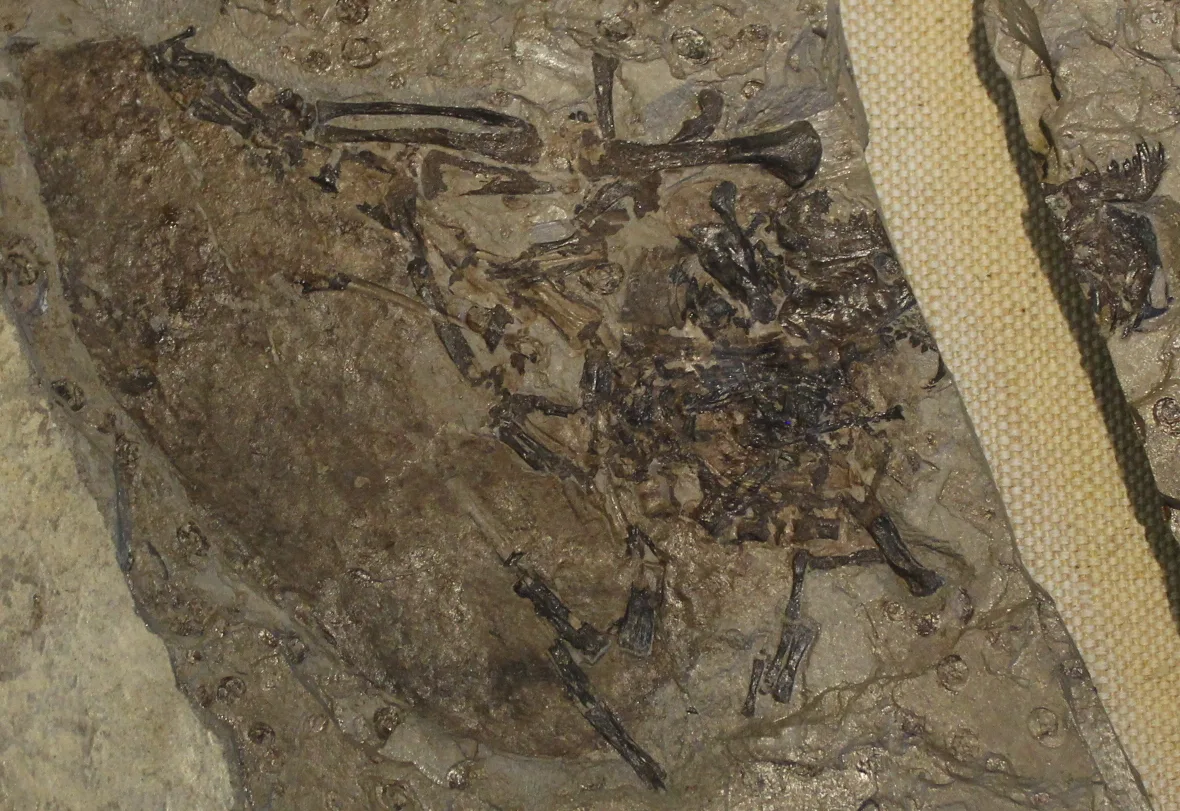
图2 正型标本IVPP V14739的化石实物照片。骨架周围密集的圆形壳瓣是叶肢介(Euestheria)的甲壳,与论文描述一致。图片取自维基百科公有领域资料。
产出地点是内蒙古宁城县的道虎沟层,这套地层的年代至今仍有争议。论文列出过从中侏罗世、晚侏罗世到晚侏罗世与早白垩世之间的多种意见,而多数研究采用约16400万年的中侏罗世口径,误差约400万年。能够确定的是,道虎沟层的动物群早于距今12500万年的热河生物群。也就是说,无论采信哪一种测年方案,远古翔兽的年代都要比1.25亿年更早。把它放在侏罗纪中期的地景里,意味着当时同一片土地上还生活着后来以羽毛和飞行闻名的那批恐龙。
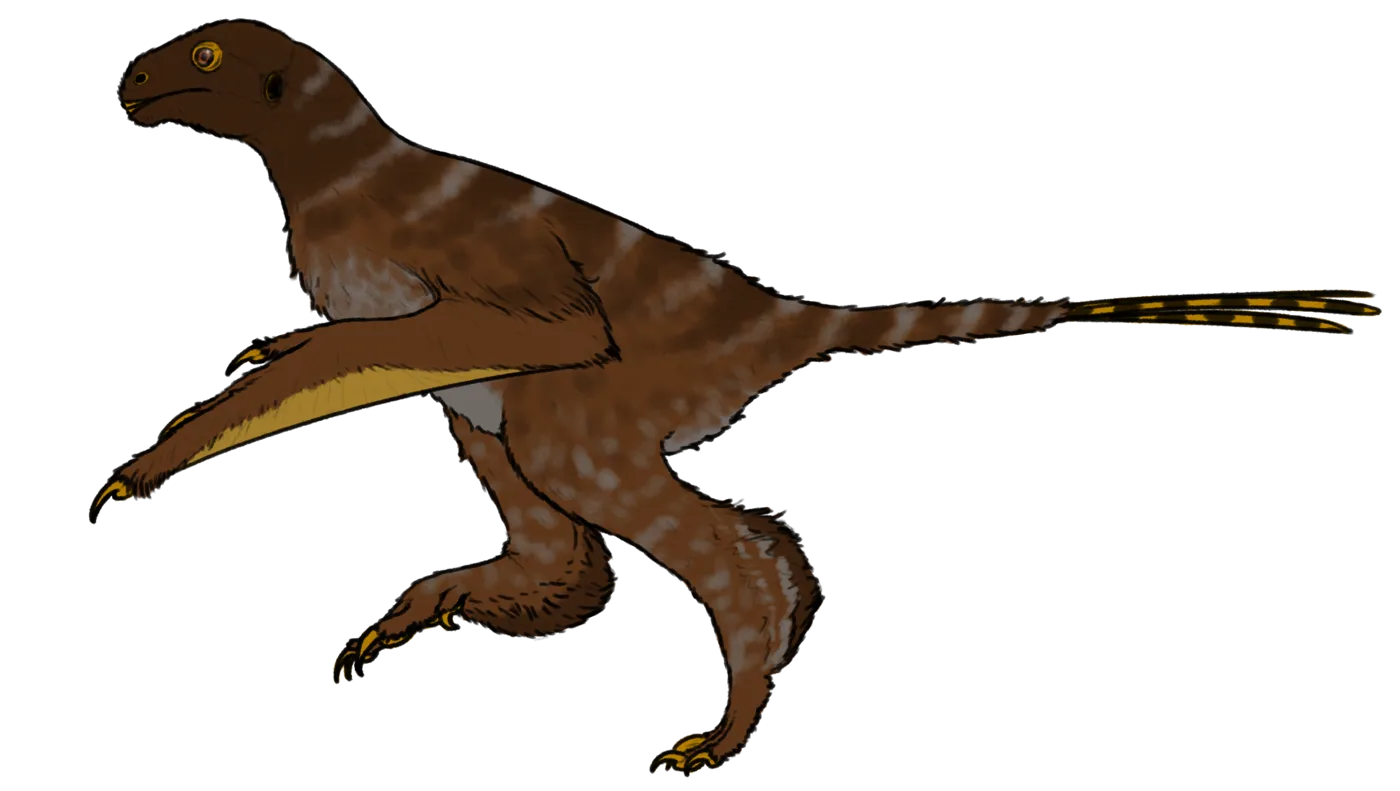
图3 小盗龙,一种与远古翔兽大致同时代的小型兽脚类恐龙。图片取自维基百科公有领域资料。
论文的诊断部分列举了一系列特征,其中第一条就是具宽大的、密被毛发的翼膜。值得注意的是翼膜的范围。现生飞鼠的翼膜张挂在四肢之间,不延伸到指趾;而远古翔兽的翼膜一直延伸到手指与脚趾,把指趾夹在膜与肢之间。这条差别在结构上意味着,支撑翼膜的骨架要延伸到指骨与跖骨的末端,整张膜才会成为一个完整的受力面。论文同时指出它的四肢细长,与现生飞行和滑翔哺乳动物相当;拇趾内侧偏转,具备对握能力;近节指骨上有明显的屈肌鞘嵴——那是屈肌腱鞘在骨面留下的压痕,说明手指承担了相当强的抓握负荷。
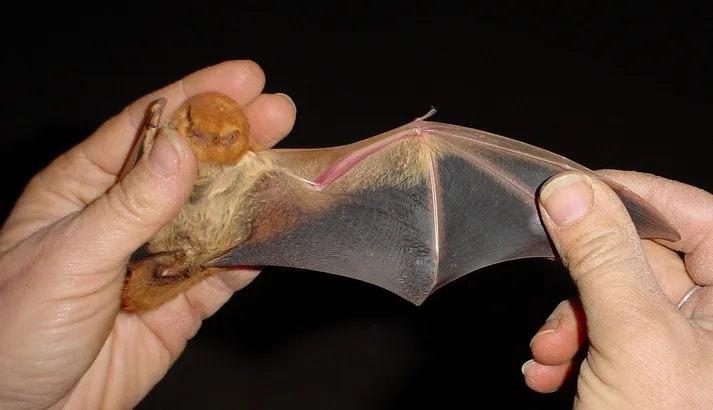
图4 现生吸血蝠的翼膜,指与趾并未被夹在膜内。翔兽的翼膜范围与此不同。图片取自维基百科公有领域资料。
支撑翼膜的还有一条长而扁平的尾。论文记载它的尾椎经过延长、背腹扁平,还保留了脉弓这一原始结构。扁平尾的意义在于增大翼剖面——滑翔时,机翼的升力取决于翼面积与迎角的关系,尾巴越扁平,从尾缘到尾根这段气流就越容易被稳定地托住。这也解释了为什么它的四肢与尾巴都要往极端方向改造。不过化石留下的手部保存不良,形态不明,翼膜在指端的具体连法至今无从确证。
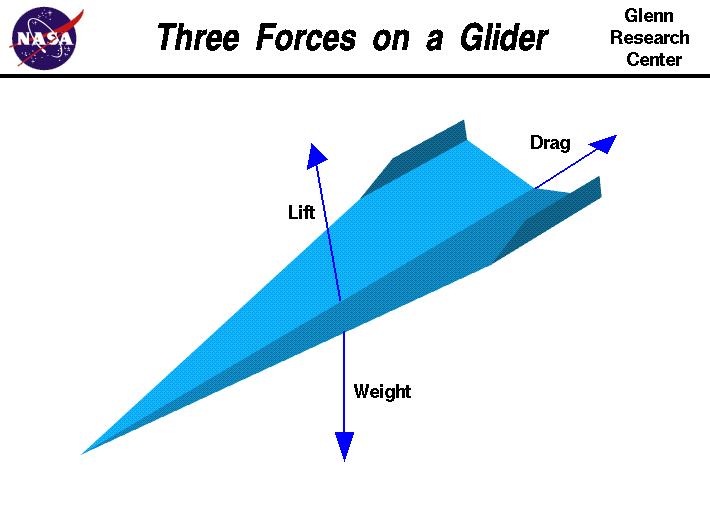
图5 滑翔体受到的升力、阻力与重力。翼面积与迎角决定升力能否托住体重。图片取自公有领域资料。
它的牙齿是这件标本最反常的部分,也是当年分类困难的原因。齿式为上颌3枚门齿、1枚犬齿、4枚前臼齿、3枚臼齿,下颌2枚门齿。门齿小巧呈圆锥形,犬齿长而尖锐;臼齿的形态最为独特:牙尖高、尖、向后倒伏,排成前后一线,彼此却深深分隔。下颌臼齿的牙尖倒伏角度比上颌更大,排列也更紧密;上颌第一臼齿的 d 尖从唇侧叠压第二臼齿的 b 尖。这套排列方式说明牙尖主要承担剪切功能,论文因此推断它的食性偏向肉类。
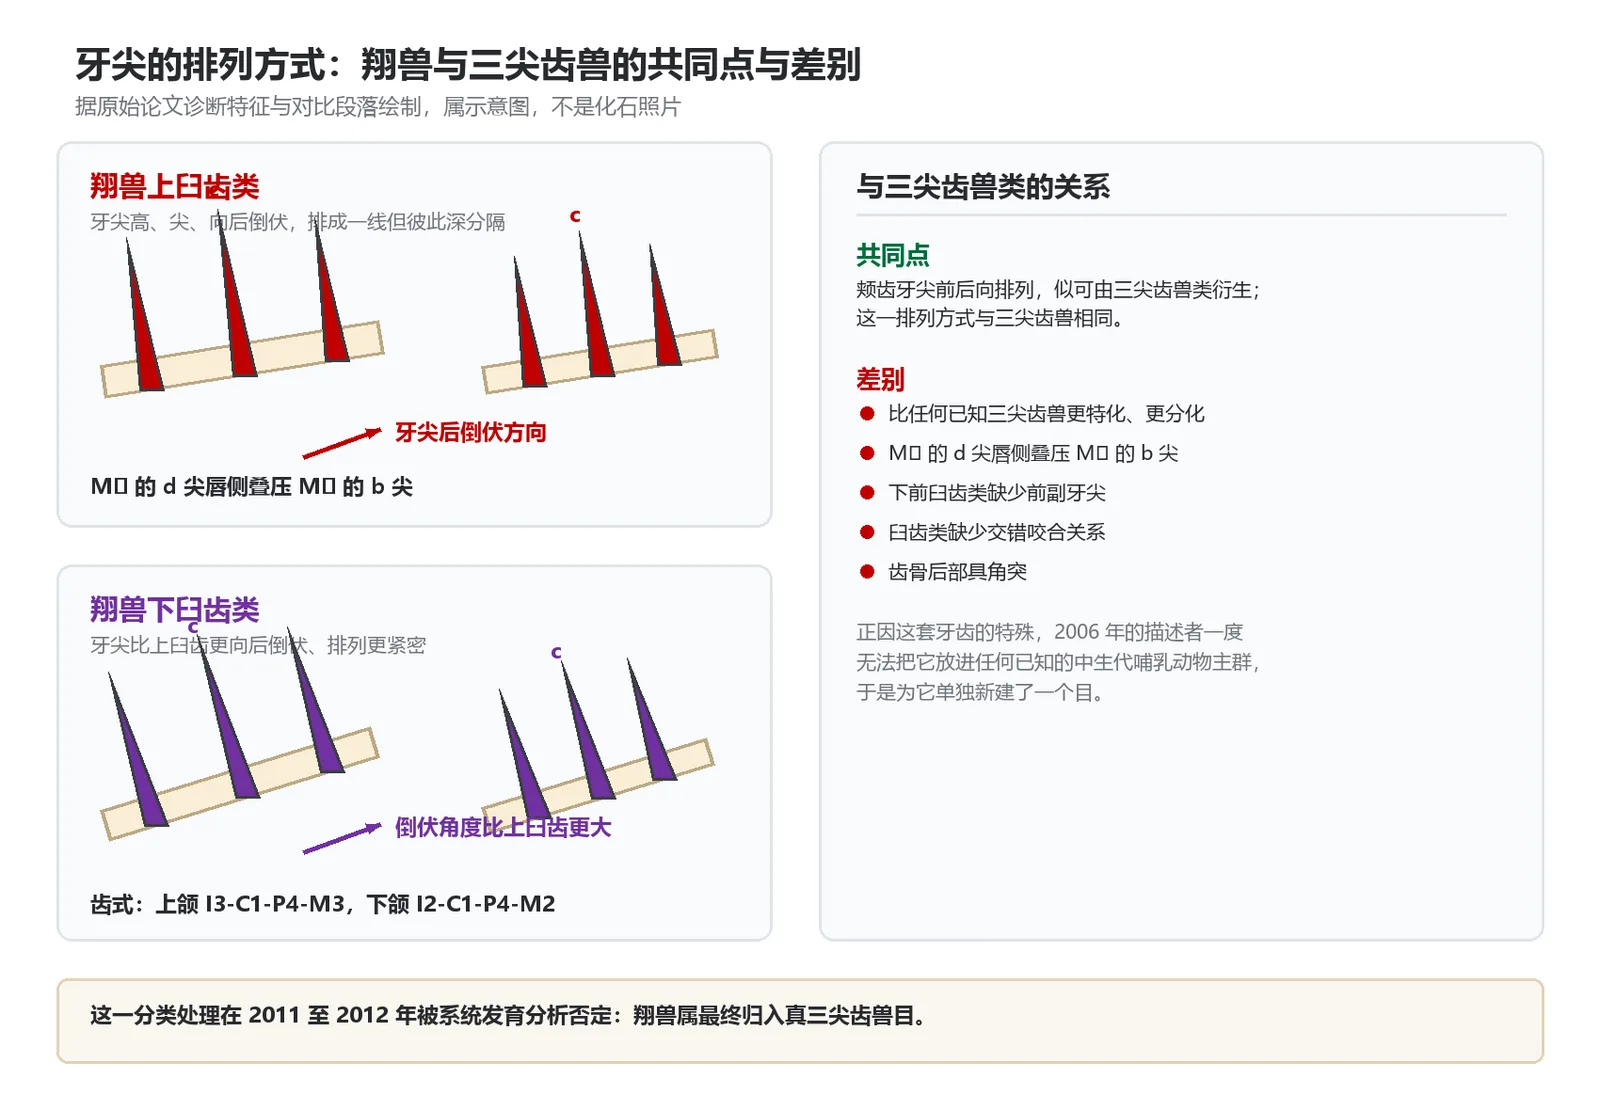
图6 翔兽臼齿牙尖的排列方式,以及它与三尖齿兽类的共同点和差别。据原始论文绘制,属示意图。
把体量考虑进去,这个食性判断就有了一个明确指向。2013年一项研究把翔兽列入食虫类群,而把它的近亲阿根廷尖齿兽属(Argentoconodon)列入肉食类群。这一区分值得留意:大多数现生滑翔哺乳动物以植物为主,从鼯鼠类到有袋类的滑翔类群皆是如此。在以植物为主的门类里,一个以昆虫为主的成员显得格外反常。这种反差指向一条清楚的取食分工:翔兽占据的是树冠层靠近地面的那一段,以昆虫为食,与同期那些取食植物的哺乳动物互不冲突。论文还把这件标本与食虫蝙蝠作过比较,两者虽然相隔一亿多年,却在空中捕捉小型昆虫这件事上落到了一起。至于它的股骨,形态在哺乳动物中几乎找不到同类:股骨头小、呈卵圆形且没有颈,这种构造能抵抗滑翔时的飞行应力,代价是地面行走变得笨拙。换句话说,翔兽把大部分生存成本都押在了树上,一旦被迫落地,它并不擅长。
图7 飞蜥的滑翔姿态。滑翔并非哺乳动物的专利,翔兽只是留下化石记录的最早滑翔哺乳动物之一。图片取自维基百科公有领域资料。
论文发表时给它的分类处理相当隆重。作者的系统发育分析没能把远古翔兽放进任何一个已知的中生代哺乳动物主群:真三尖齿兽类、多瘤齿兽类、鼹兽科、裂齿兽科、磔齿兽目、后兽下纲、真兽下纲,它都落在这些类群之外。既然落不进去,就只能另立门户。2006年的描述因此为它单独新建了一个目和一个科:翔兽目(Volaticotheria)与翔兽科(Volaticotheriidae)。这篇论文登上了《自然》的封面,它成为当时极少数以封面文章形式发表的哺乳动物研究之一。
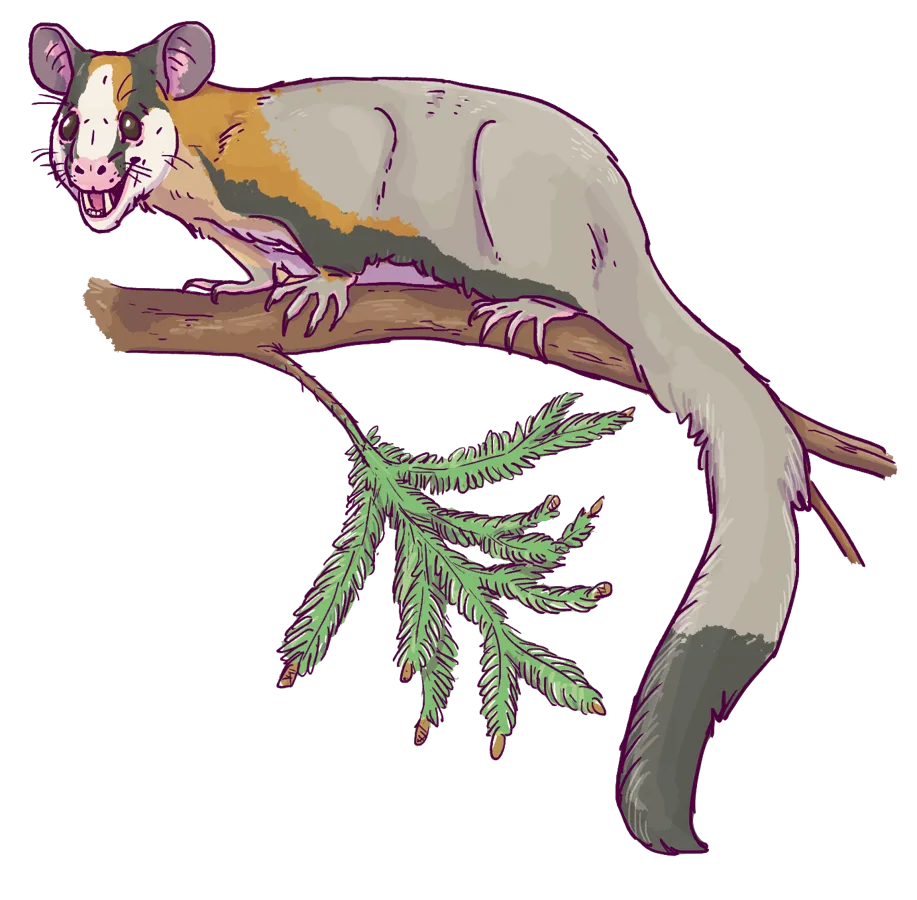
图8 远古翔兽的生活复原画,非化石照片。这幅复原未绘出翼膜,而翼膜恰是这件标本的关键特征。图片取自维基百科公有领域资料。
这个分类只维持了五年。2007年,罗哲西在一篇早期哺乳动物演化综述中提出,翔兽属在分类上可能实为真三尖齿兽类。2011年至2012年,加埃塔诺与鲁吉耶的系统发育分析给出了确认:翔兽属确属真三尖齿兽目、三尖齿兽科,并被放入阿尔蒂尖齿兽亚科,与阿根廷尖齿兽属、鱼尖齿兽属以及三尖贼兽属互为近亲。近年的研究保持了这一亲缘关系,但把翔兽属连同上述几个属一起移到三尖齿兽科中更基干的位置,脱离阿尔蒂尖齿兽亚科。现行处理是:真三尖齿兽目,三尖齿兽科,翔兽族,翔兽属。
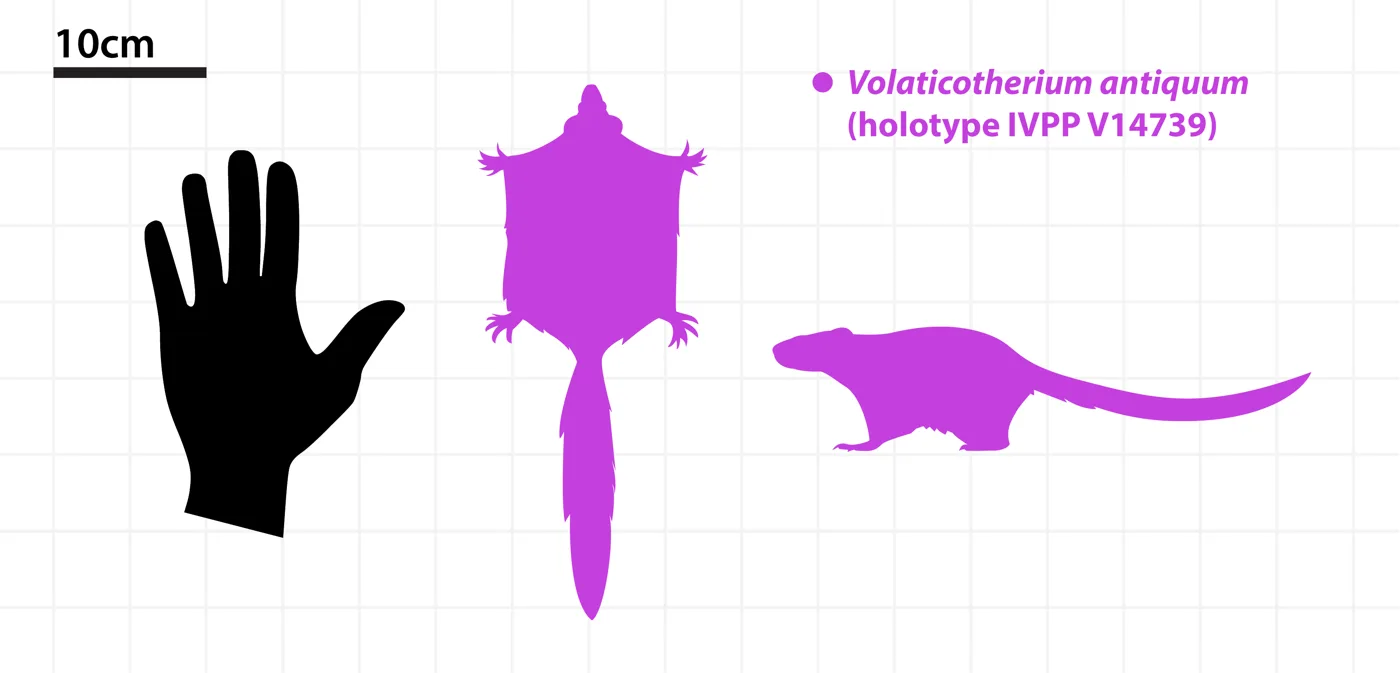
图9 体型对比图。骨架与10cm比例尺及人手剪影对照,可见其体量在手掌上下。图片取自维基百科公有领域资料。
还应该补上这项发现的边界。道虎沟层的年代至今没有定论,「约16400万年」只是多数研究采用的方案,并非公认结论。手部化石保存不良,指端与翼膜的连法无从确证。标本至今只有这一件,翔兽的绝大多数特征来自一副完整度有限的骨架,其中相当一部分是研究者的推断。至于「最早的滑翔哺乳动物」这个称号,它在2006年成立,随后又被同一时期哈米齿兽类中弥翼兽属(Maiopatagium)、小飞兽属(Vilevolodon)和仙兽属(Xianshou)的发现所修正。不过论文那个判断并没有被推翻:早期哺乳动物确实在运动方式上做过极其多样的尝试,而它们尝试占据天空的时间,与鸟类争取天空的时间大致相当,甚至更早。
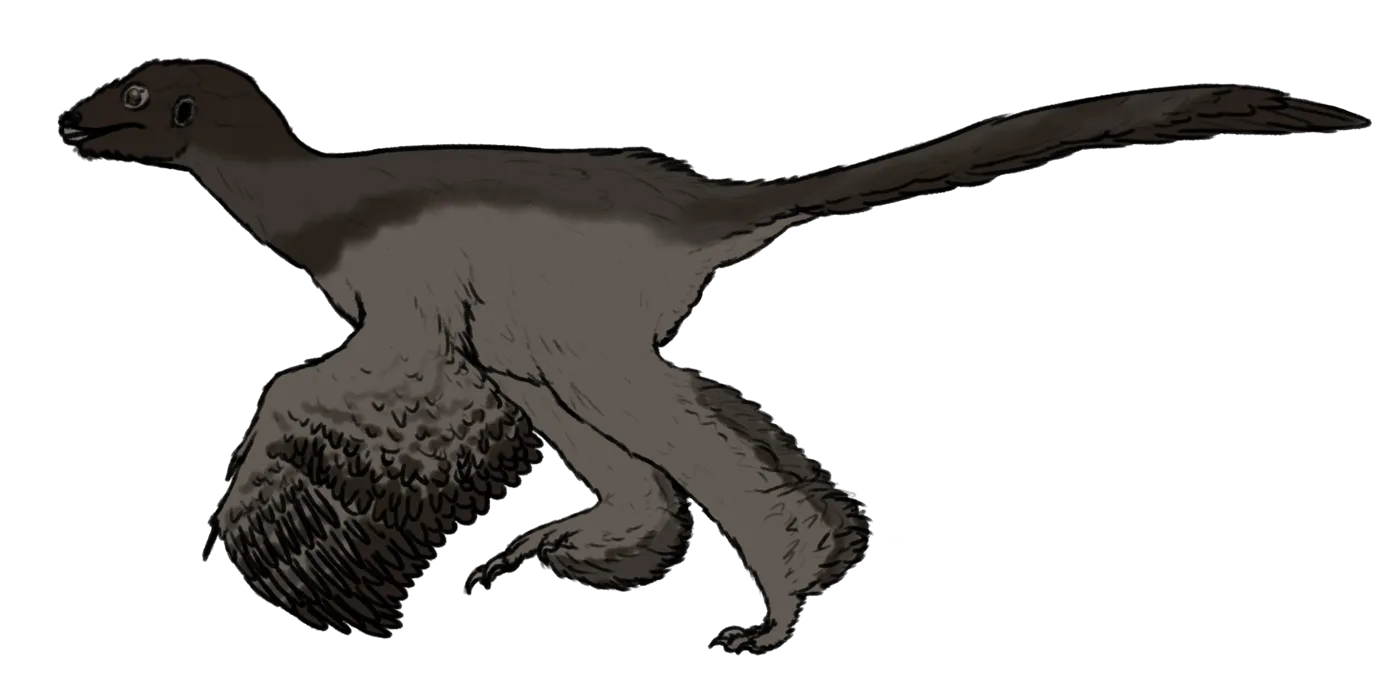
图10 小盗龙羽毛化石的复原。同期恐龙已经在羽翼上做出尝试,而哺乳动物的滑翔也在同一时期出现。图片取自维基百科公有领域资料。
这幅骨架的真正分量,恰恰在于它把「哺乳动物」这个词的边界往外推了推。在此之前的化石记录里,中生代的哺乳动物要么还贴着地面活动,要么体型大到不必担心树栖的风险。翼膜与细长四肢的组合,把一种哺乳动物送进了此前只有爬行类占据的空中生态位。这件事的意义不限于翔兽本身:它说明三尖齿兽类这一支在侏罗纪中期已经分化出了多样的运动策略,而当时距鸟类真正掌握飞行,还有相当长的距离。换句话说,哺乳动物尝试占据天空的时间并不比鸟类晚,只是两条路线后来走向了完全不同的结局——一支留在地面扩展体型与取食策略,一支滑翔,然后缩回树间,最终演化成今天种类最多的哺乳动物。
参考资料
- https://www.nature.com/articles/nature05234[1] 孟津, 胡耀明, 王元青, 汪筱林, 李传夔. 中国东北地区一种中生代滑翔哺乳动物. Nature, 2006, 444(7121): 889–893.
- [2] Meng J, Hu Y M, Wang Y Q, Wang X L, Li C K. A Mesozoic gliding mammal from northeastern China. Nature, 2006, 444(7121): 889–893.
- [3] Gaetano L C, Rougier G W. New materials of Argentoconodon fariasorum and its bearing on triconodont phylogeny. Journal of Vertebrate Paleontology, 2011, 31(4): 829–843.
- [4] Gao K Q, Shubin N H. Late Jurassic salamandroid from western Liaoning, China. Proceedings of the National Academy of Sciences, 2012, 109(15): 5767–5772.
- [5] Grossnickle D M, Polly P D. Mammal disparity decreases during the Cretaceous angiosperm radiation. Proceedings of the Royal Society B, 2013, 280: 20132110.
- 图片来源声明
- 图1、图3、图4、图7为公有领域素材,取自维基百科;图2、图5、图6、图8、图9据原始论文与公开文献数据绘制。
- 本文所涉标本为正型标本 IVPP V14739,保存于中国科学院古脊椎动物与古人类研究所。学名在原始论文中拼作Volaticotherium antiquus,按动物命名惯例作中性Volaticotherium antiquum,本文采用后者。