Appearance
加斯东鸟:被叫了一百五十年的欧洲猛禽
Gastornis,又名不飞鸟、冠恐鸟
在古生物学里,在古生物学里,一个属名有时会比一具骨架能经得起更长时间的考验,这种情况在化石记录里并不罕见。加斯东鸟(Gastornis)的骨架化石在1855年就已经被找到,并且很快被列为当时所知最古老的鸟类之一。此后一个多世纪里被反复描述、反复改判,也被反复画成完全不同的样子。关于食性、分类位置与现生鸟类的关系,答案在这段时间里换了几轮。本文要讲的是这具两米高的巨鸟骨架,以及围绕它发生的三次改判。
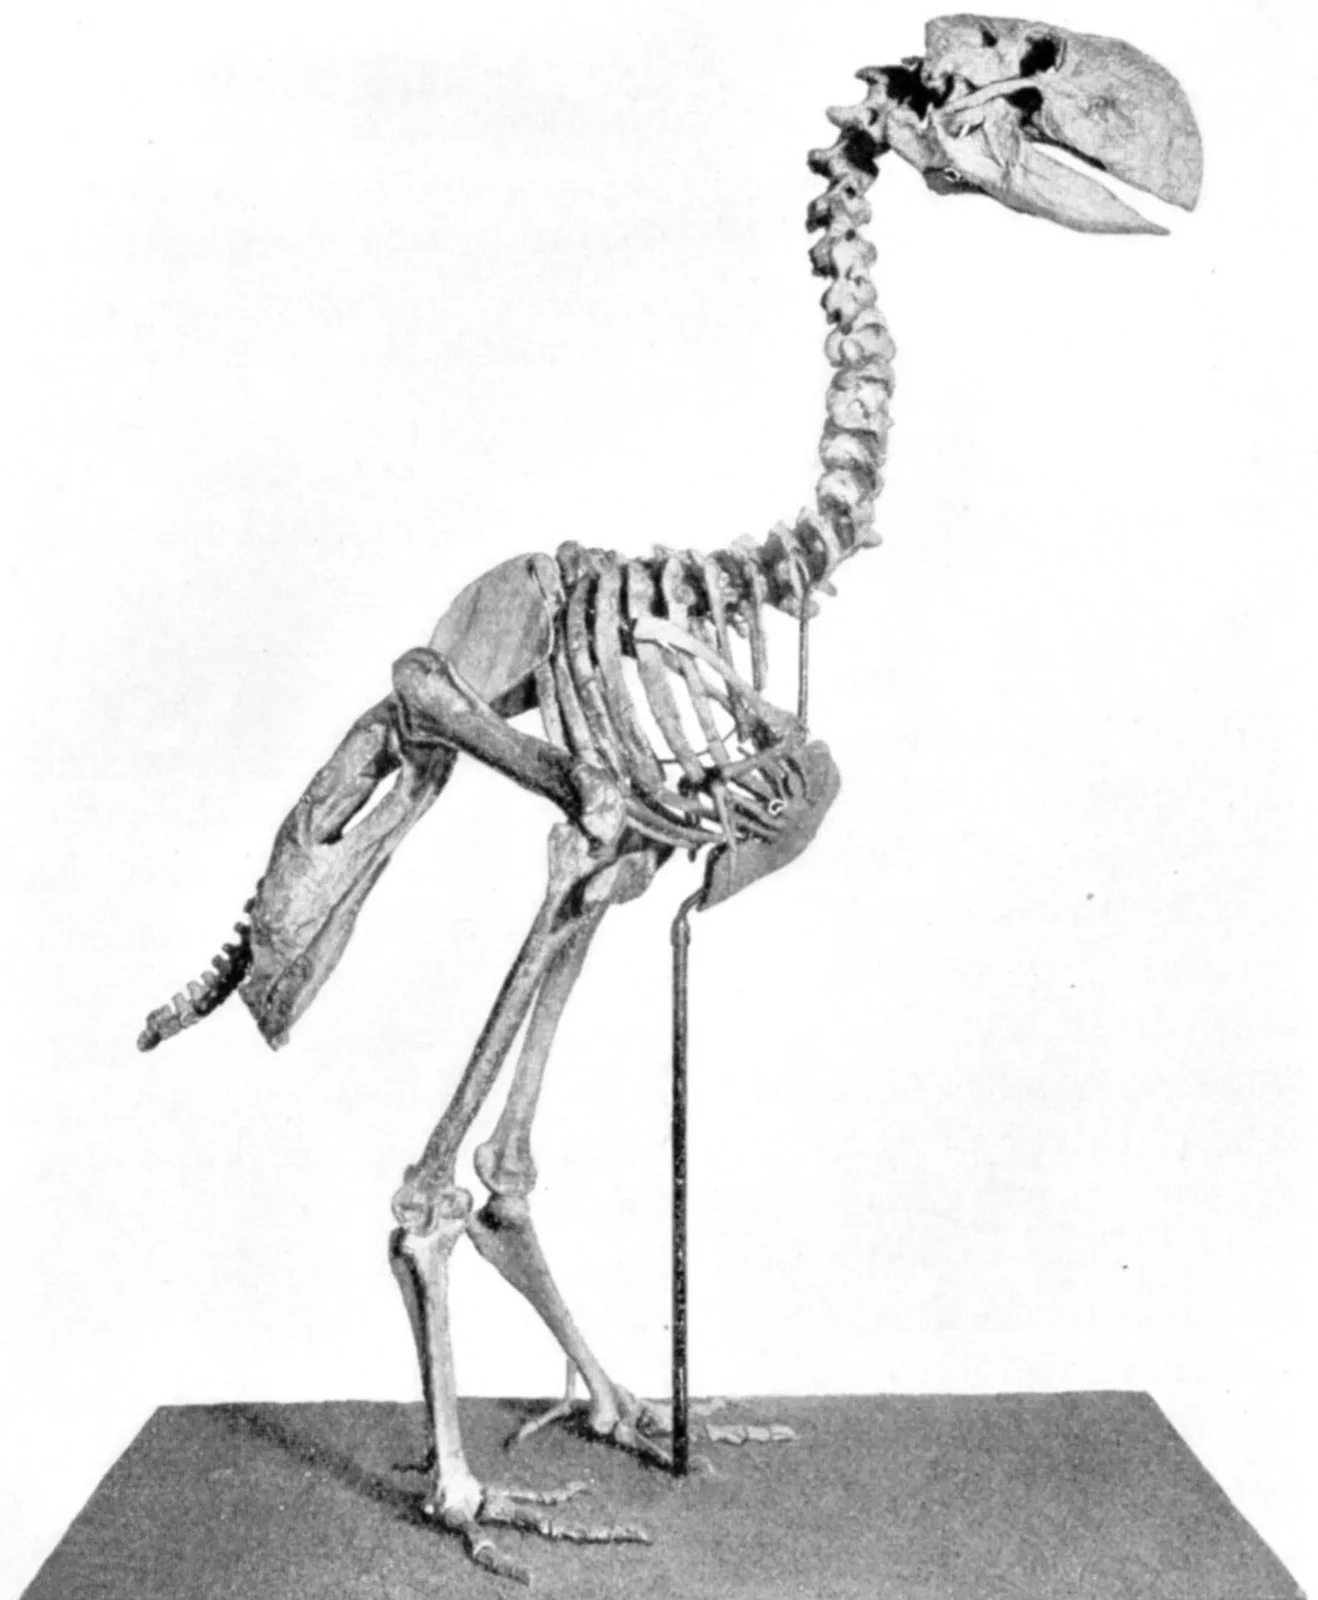
图1 加斯东鸟的装架骨架。从装架可以看出,它的躯干短而厚重,后肢粗壮,翅部已经退化到不具备飞行功能。
加斯东鸟是一类不会飞的巨型鸟类,属于加斯东鸟形目、超目泛鸡类,与雁形类也就是鸭和鹅这一支关系最近。身高在1.5米到2.15米之间,最大的个体体重估计为175到225千克。化石记录分布在法国、德国、比利时、英国、瑞士、西班牙、北美以及中国河南,生存年代从晚古新世一直延续到中始新世。模式种是Gastornisparisiensis,另有1980年命名的大型种Gastornisgiganteus。目前归入这一属的种数仍有争议,不同研究给出两到三个不等。
属名来自一位法国工程师加斯顿·普兰特。1855年,古生物学家埃德蒙·赫伯特根据巴黎盆地穆松地区塑性黏土层里找到的几块肢骨建立了这个属,模式种被命名为Gastornisparisiensis。发现地的地层相当年轻,而当时人类已知最古老的鸟类是始祖鸟,两者之间隔着将近一亿年。这一空白使得加斯东鸟在被发现之后就成了当时所知最古老的鸟类之一,这批材料同时也是欧洲最早的一批大型鸟类记录。
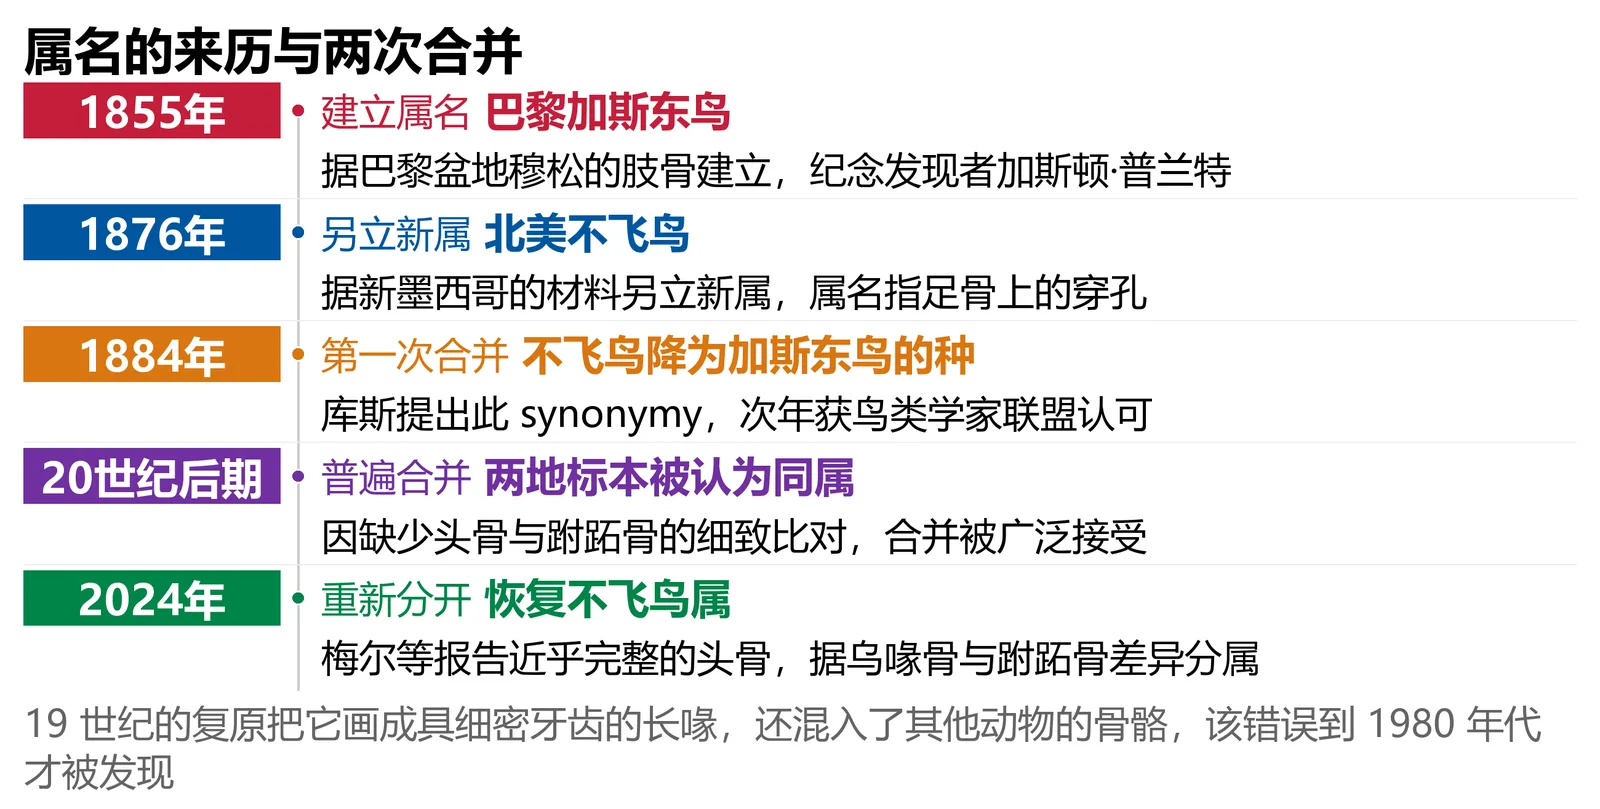
图11 属名的沿革与两次合并。从1855年建立属名到2024年重新分属,经历三次归属变动。
北美材料的发现要晚二十一年。1876年,美国古生物学家爱德华·德林克·科普在新墨西哥州的瓦萨奇组发现另一批化石碎片,材料包括肢骨和下颌的残段。他没有参考欧洲已有的材料,而是另立了一个新属,叫不飞鸟(Diatryma),属名取自古希腊语里穿孔的意思,指的是足骨上那些明显的孔洞。此后北美发现的大部分材料都被归进不飞鸟,而欧洲的归加斯东鸟,两个名字各据一方,维持了将近四十年。
麻烦出在对加斯东鸟的复原上。1881年,法国古生物学家维克多·勒蒙根据当时能找到的骨骼画出了加斯东鸟的复原像,并把它作为重建这一类群形态的主要依据。那张图在欧洲广泛流传,此后几十年里被不断临摹、不断再版,是当时唯一能看到加斯东鸟全貌的图像。可这幅图里的头骨其实并不属于加斯东鸟,图上的一部分骨骼来自别的动物。这种把不同动物拼在一起的错误,直到1980年代才被研究者发现。
在19世纪那幅错误的复原像影响下,加斯东鸟被描述成一种腿长颈长喙细的巨型鹤形鸟类,在某些复原图里甚至还被画成带密集牙齿的长喙。19世纪末,科普把这类动物当作当时陆地上最大的食肉动物;20世纪的教科书里,它常被列为顶级掠食者,并把体型放到当时已知陆生动物的前列,猎物包括早期的始祖马。欧洲最早那批化石的年代恰好与始祖马活动的时期重合,联想格外顺理成章,也让它在很长时间里被当成凶猛的代表。
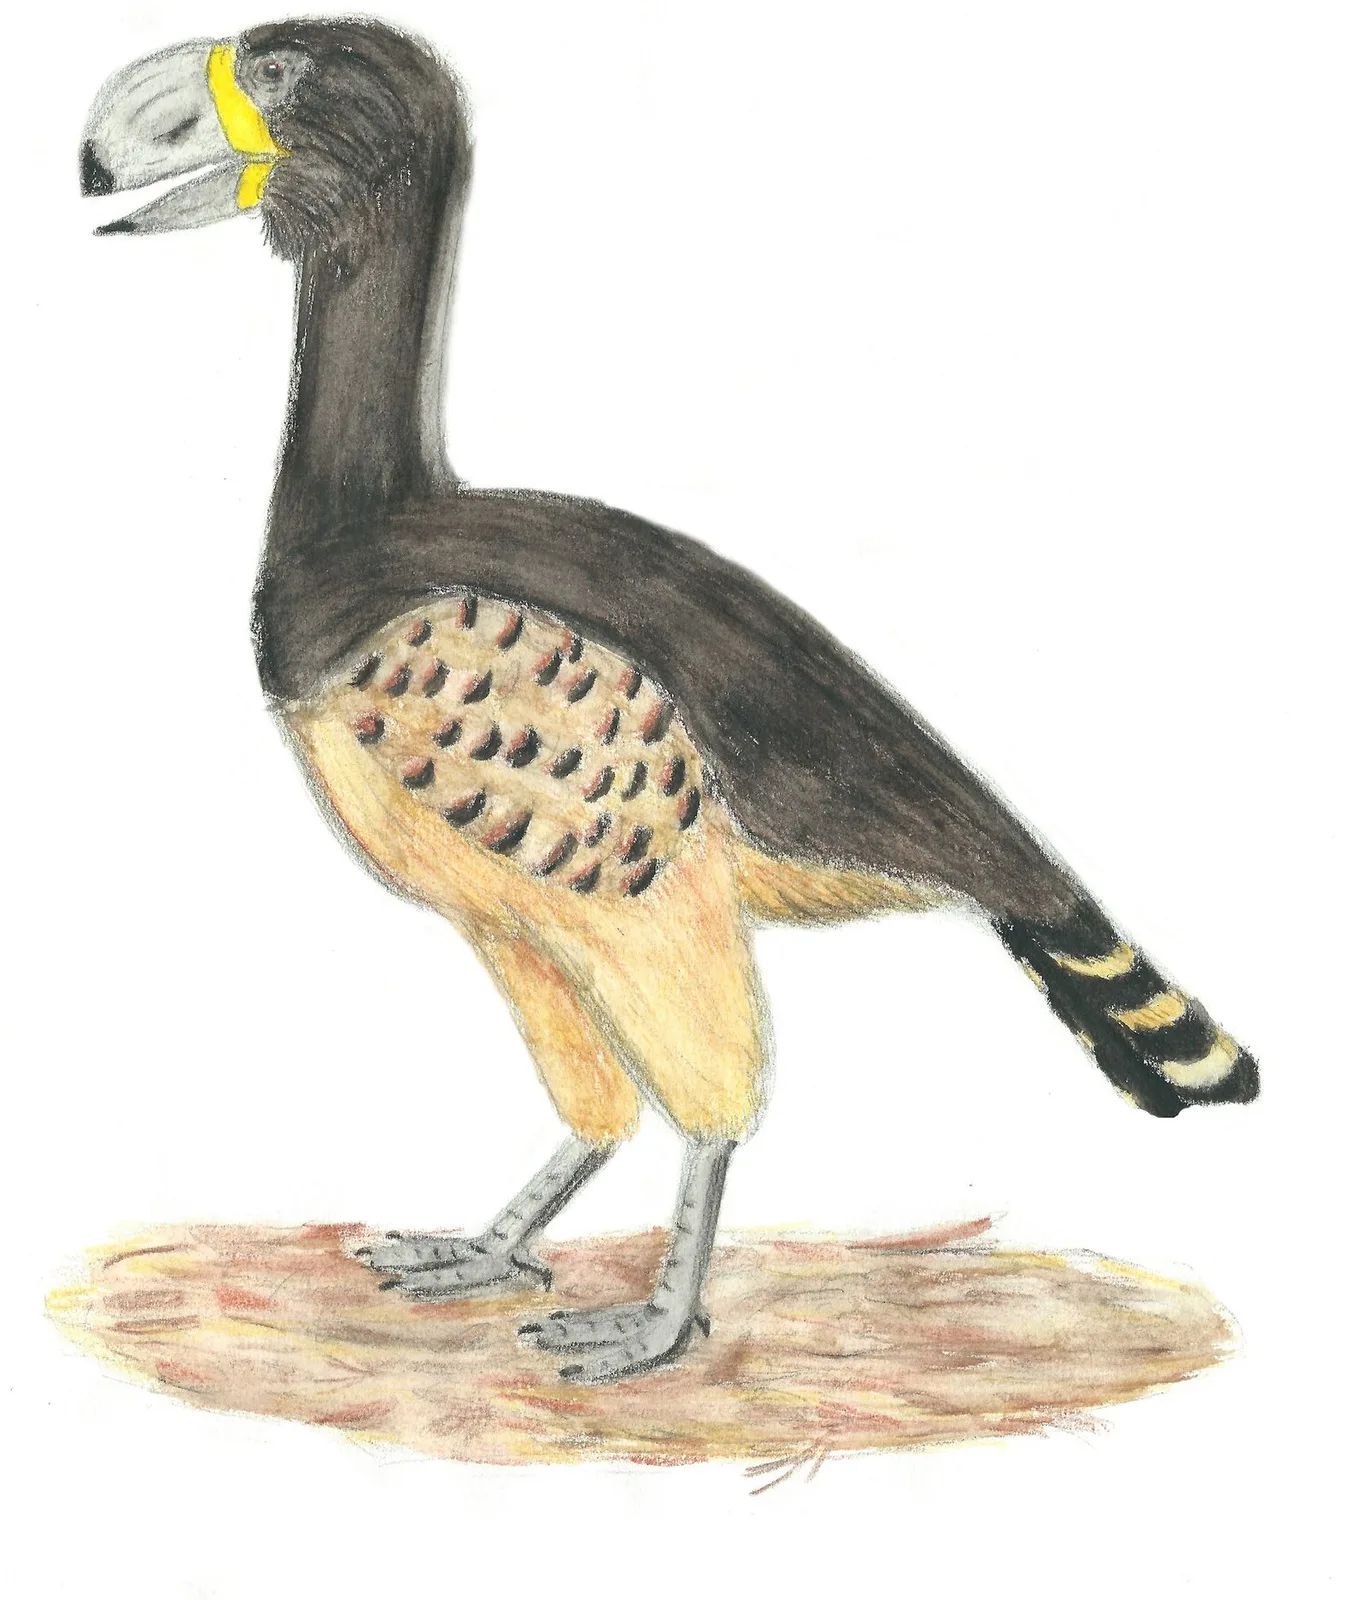
图2 加斯东鸟的生活复原画。按目前的理解,它应当是一种体型巨大的植食鸟类。
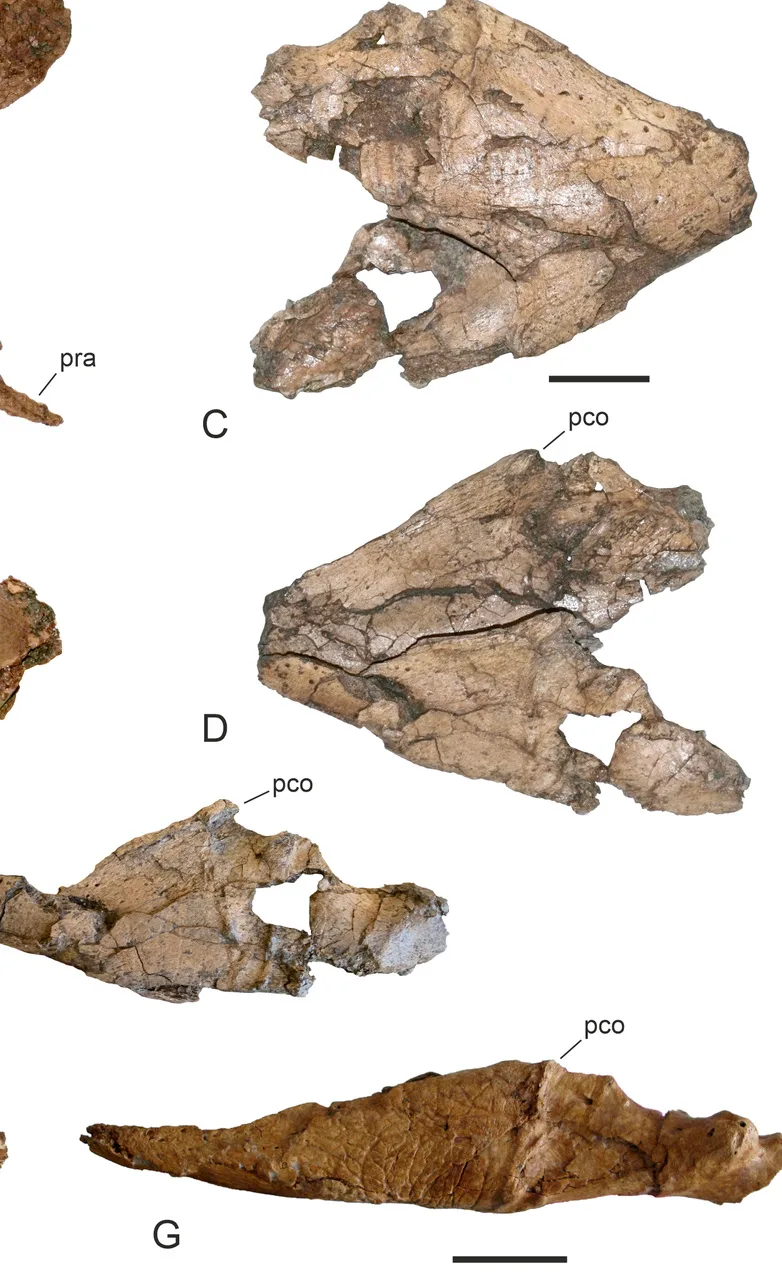
图5 下颌标本。下颌深、咬肌力臂长,这套装置能产生很大的咬力,也是支持捕食解释的依据。
1884年,美国鸟类学家埃利奥特·库斯指出不飞鸟与加斯东鸟应当是同一个属,次年这一处理得到美国鸟类学家联盟的认可。但真要比较两地的标本并不容易,因为勒蒙那幅拼错的复原图仍在广泛流通,可靠的比对始终无从展开。于是合并的提议被反复提出、反复搁置,争论持续了半个多世纪,直到20世纪后期才成为主流意见。不过,这一悬案前后持续了一百四十年,其间双方谁也拿不出能一锤定音的证据。
转机来自一件1958年就被发现、却在六十多年后才被辨认为头骨的标本,这份材料在博物馆里躺了大半个世纪。2024年,德国古生物学家梅尔等人重新对它进行研究,报告了第一件近乎完整的加斯东鸟类头骨,全长约35厘米,保存状况好于此前任何一件材料。在此之前,头骨一直缺失,正是无法比较两地标本的关键原因之一;这一标本一出现,分属的问题也就有了重新审视的支点。
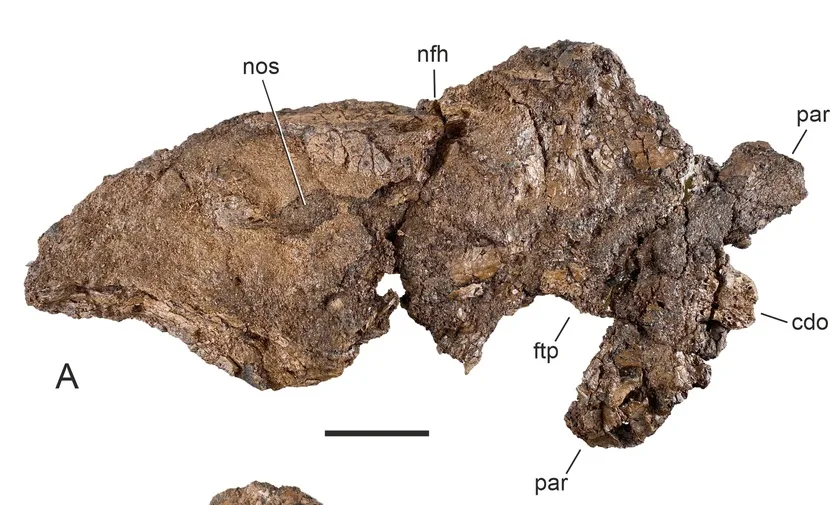
图3 近乎完整的头骨。2024年报告的标本,全长约35厘米,此前加斯东类的头骨长期缺失。
不飞鸟被重新确立为独立属,与加斯东鸟并列。判断依据是乌喙骨和跗跖骨这两处骨骼的差异:欧洲标本的乌喙骨与肩胛骨愈合成一个整体;而北美标本的跗跖骨粗细比例不同,关节面的形态也有区别。他们认为,把所有加斯东类都归进加斯东鸟并不能如实反映类群内部的关系,不飞鸟属应当恢复。这一判断与一百四十年前库斯的处理正好相反,也把这场持续了一个半世纪的争论重新拉开。
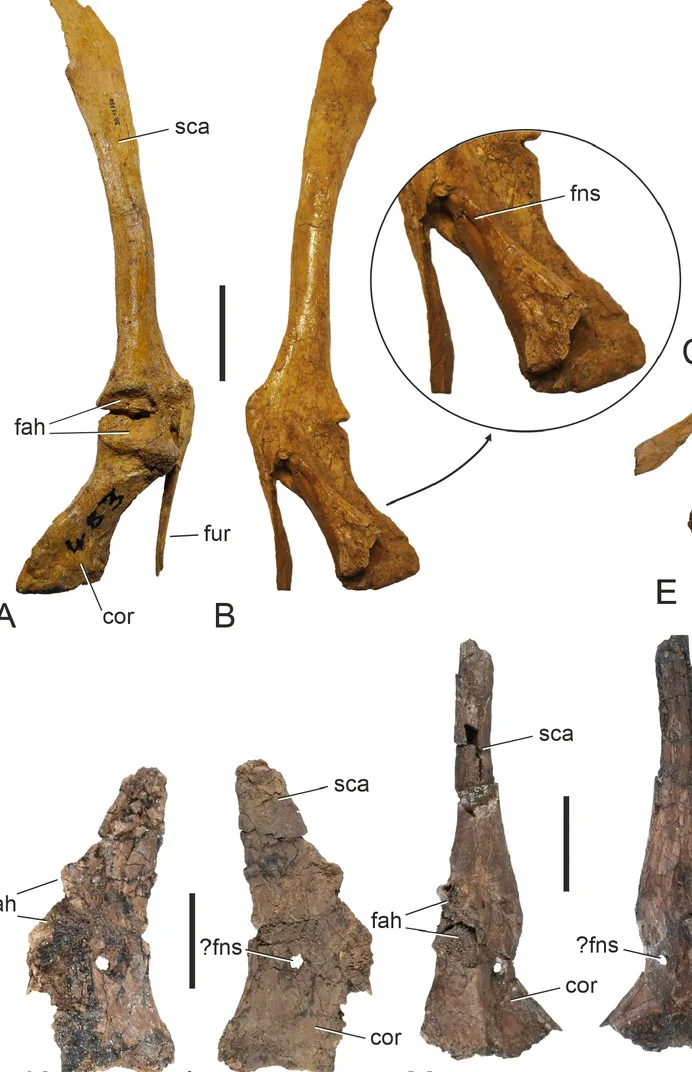
图6 肩带乌喙骨。欧洲标本的乌喙骨与肩胛骨愈合,这一特征是2024年重新分属的主要依据之一。
1980年,侯连海把中国河南淅川玉皇顶组的一段胫跗骨远端描述为一个新属新种,淅川中原鸟,正型标本编号IVPPV5864,出土地层属于早始新世。这一段残骨是中国境内已知最早期、也是最大的鸟类化石记录,此后被当作中国鸟类化石史上的一个重要起点。2013年的研究建议把它改归加斯东鸟属,理由是与欧洲、北美标本的差异很小。2024年的研究没有接受这一处理,认为仅凭这一段残骨不足以确定归属。
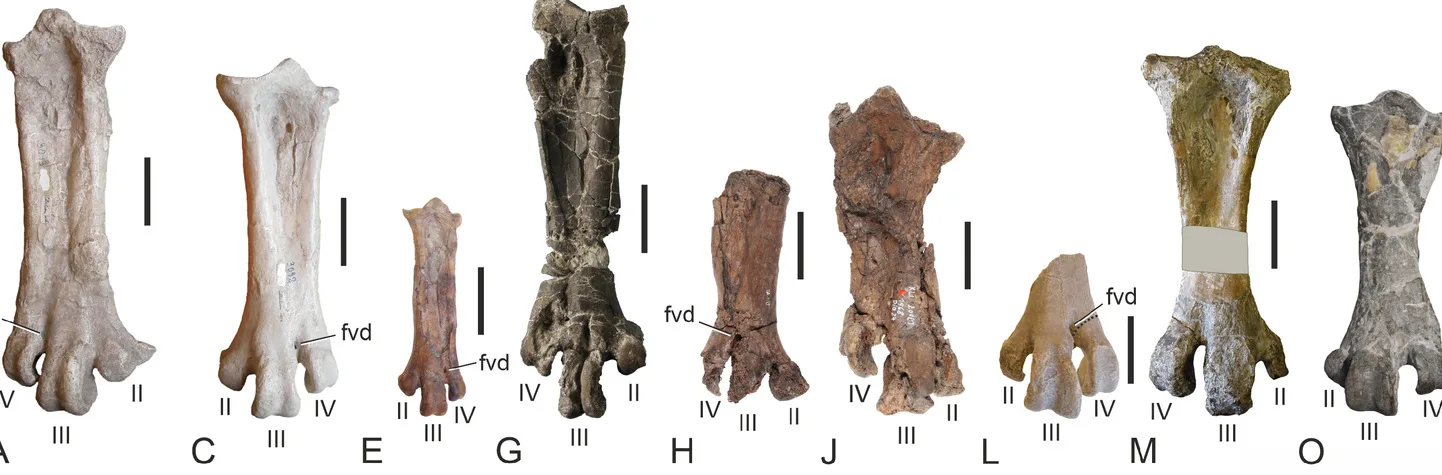
图7 跗跖骨。同一列中不同属的标本按真实大小排列,其粗细比例的差异是分属的另一个依据。
加斯东鸟的骨架有一处很长时间没被看出的特征:颈椎至少有13节,每一节都短而厚重,躯干也相对缩短,翅膀退化到近乎无功能,肱骨和尺骨都小而缩短,掌骨与指骨同样大幅退化,比例接近现生的食火鸡。而后肢的股骨和胫跗骨骨壁厚实,说明这具骨架靠力量而不是速度支撑身体。这样的组合与同时期的始祖鸟差别极大,它在飞行能力彻底丧失之前,已经走上了一条与始祖鸟完全不同的分支。
目前可靠的化石记录集中在晚古新世到中始新世这一段,前后大约两千万年。欧洲的材料最多,产地包括巴黎盆地、比利时、德国梅塞尔与盖瑟尔谷、英国谢佩岛;北美的材料来自怀俄明、新墨西哥和华盛顿州。从记录的时间看,北美这一支似乎比欧洲结束得更早。两地的化石都以肢骨和脊椎的零散材料为主,完整的头骨与肩带此前几乎没有,这也让这一类群的分属问题长期难以定论。目前没有晚于约4500万年的明确化石记录。
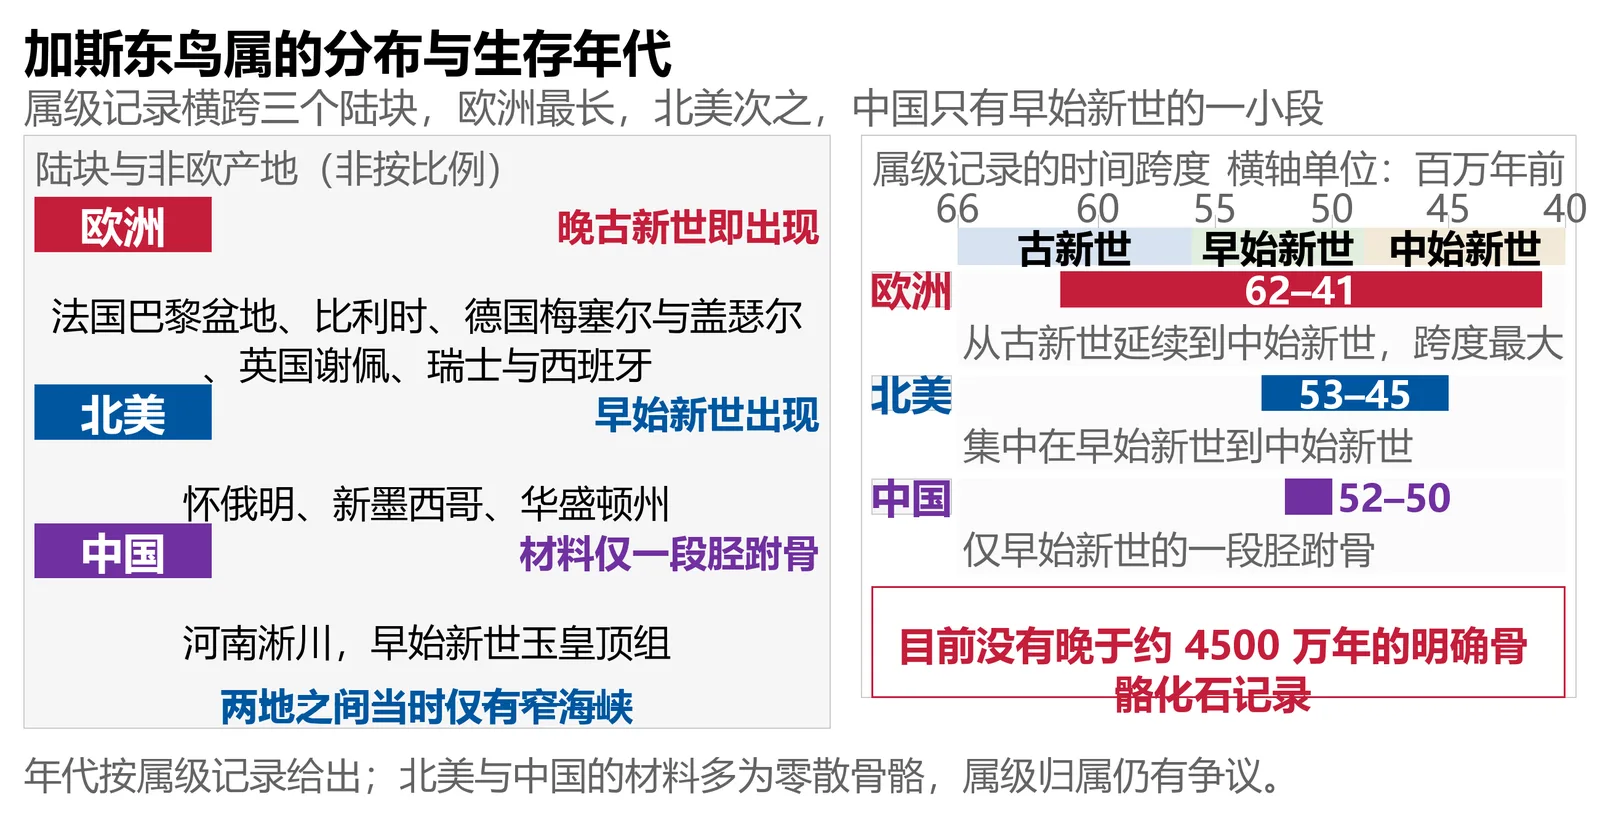
图9 加斯东类的地理分布与生存年代。左侧为三块陆块的相对位置,右侧为年代区间与各地的记录跨度。
加斯东鸟的化石在相距万里的欧洲与北美同时出现,这件事本身说明当时两地之间存在陆桥或可通行的水道,否则这一类群不会同时出现在两个相距如此遥远的陆块上。那个年代,北大西洋两岸的陆块远比今天靠得近,格陵兰大片被林地和草原覆盖,两岸之间只隔着宽度不过几百公里的海峡。同一时期还有一批哺乳动物属同样横跨两岸,欧洲与北美的动物区有过实质性的往来。
关于它的食性,争论持续了很久,两套解释各自都能找到支持的证据。早期解释是捕食,理由看起来相当充分:头骨与下颌确实被造得极强,下颌很深,咬肌的力臂长,生物力学的测算结果显示它能产生很大的咬力,足以压碎坚硬的食物。支持植食的证据则有四条,来自四个彼此独立的方向,年代和地点都不重合,彼此可以互相印证。其一,骨磷灰石的碳同位素比值与同期植食动物接近,不见食肉信号;其二,钙同位素分析没有找到食肉证据。
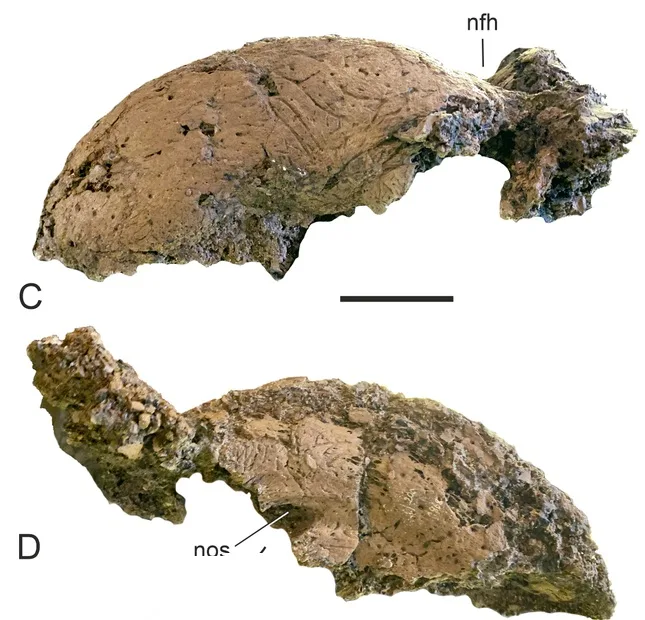
图4 上喙的多视角记录。喙侧扁而高,喙缘平直,缺少猛禽式的钩尖,这是支持植食的形态证据之一。
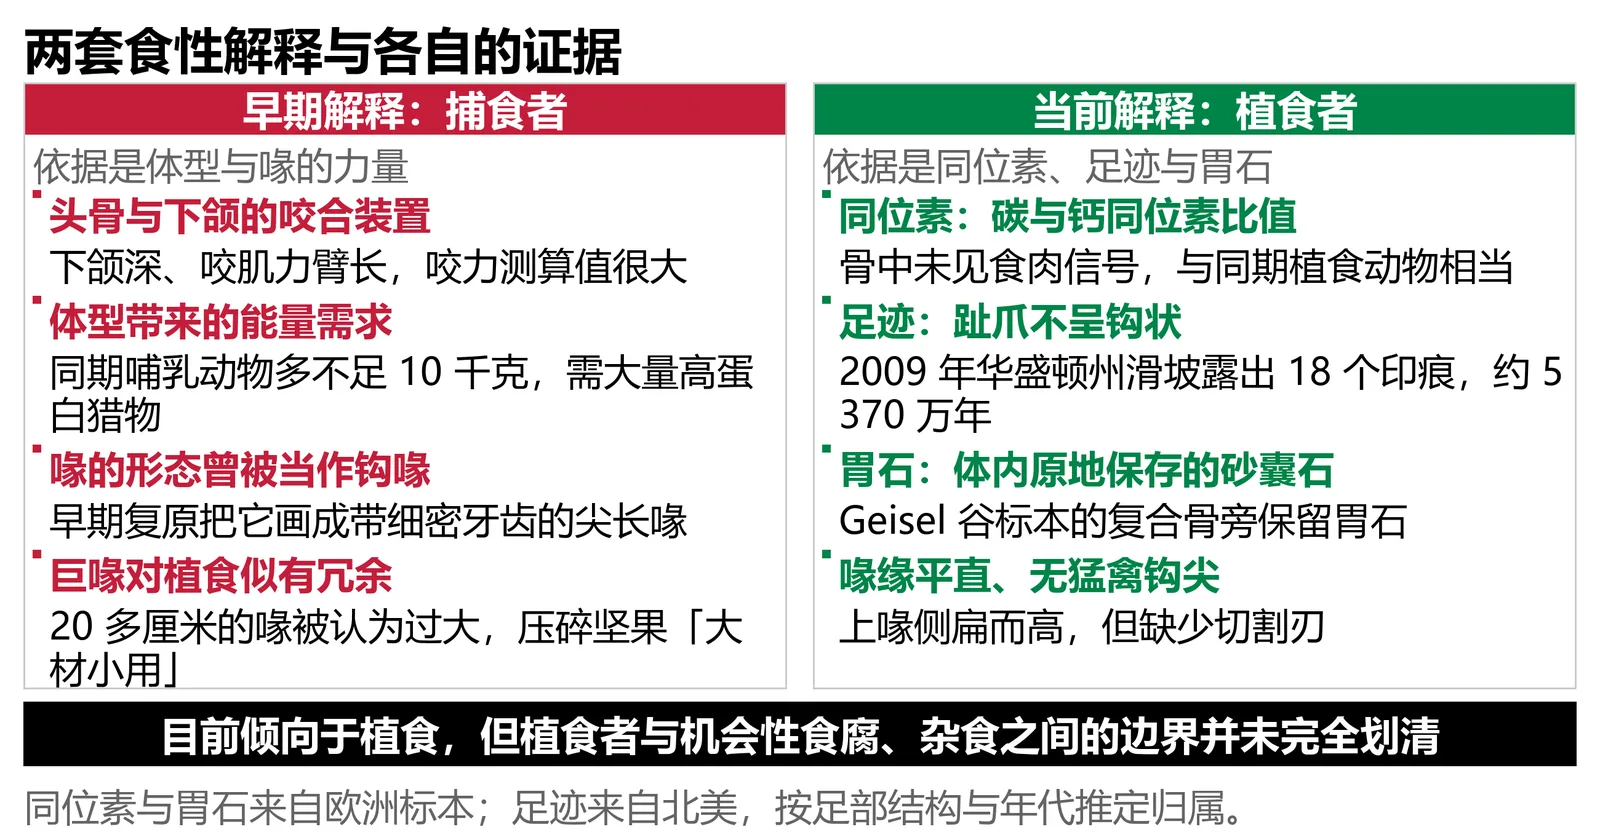
图10 两套食性解释及各自依托的证据。左侧为早期的捕食解释,右侧为当前的四类植食证据。
其三,2009年华盛顿州一次滑坡暴露出15块岩块,上面有至少18个足迹,年代约5370万年。这些印痕的形态说明,趾爪没有明显的钩状弯曲,与猛禽抓握猎物的构造不符,而食肉性的巨型鸟类通常会留下这类痕迹。其四,德国盖瑟尔谷一件标本的复合骨旁边保留着原地保存的胃石,数量与同期其他植食鸟类标本相当;而胃石是植食鸟类研磨食物的器官,位置也完全符合。四类证据都指向以植物为主,但这不等于完全不吃肉。
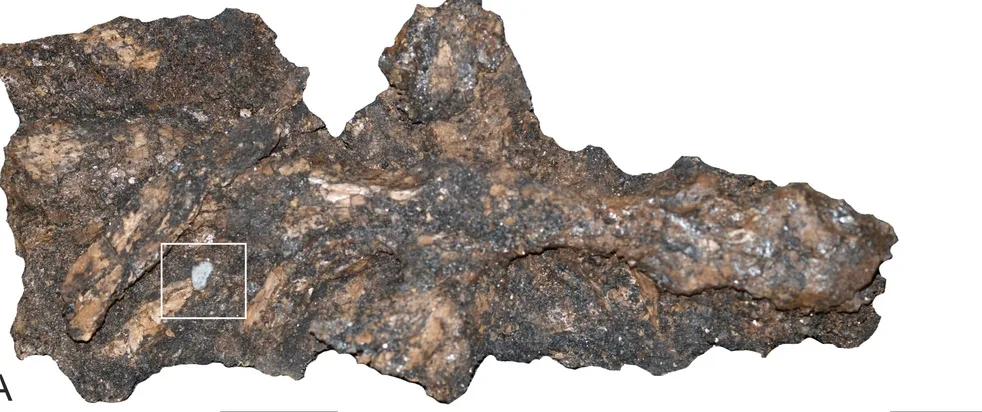
图8 胃石。这件德国标本的复合骨旁保留了原地保存的胃石,位置符合植食鸟类研磨食物的器官。
加斯东鸟没能延续到更晚的年代,目前没有晚于约4500万年的明确化石记录。中始新世之后,欧亚与北美都出现了成群的大型食肉哺乳动物,而鸟类在体格上的上限受代谢负担限制,很难与这些哺乳动物竞争。灭绝的确切原因至今没有单一答案,主流意见把大型食肉哺乳动物的兴盛列为重要因素之一。加斯东鸟的位置也随之落定:它和鸭、鹅沾亲,是一类植食巨鸟,在飞行能力彻底丧失之后的鸟类大型化浪潮里,成功地占据了一席之地。
参考资料
- [1] Mayr G, Mourer-Chauviré C, Bourdon E, Stache M. Resurrecting the taxon Diatryma: a review of the giant flightless Eocene Gastornithiformes (Aves), with a report of the first skull of Diatryma geiselensis. Palaeontologia Electronica, 2024, 27(3): a57.(https://doi.org/10.26879/1438)
- [2] Angst D, Lécuyer C, Amiot R, et al. Isotopic and anatomical evidence of an herbivorous diet in the Early Tertiary giant bird Gastornis. Implications for the structure of Paleocene terrestrial ecosystems. Springer, 2014.(https://doi.org/10.1007/s00114-014-1158-2)
- [3] Tutken T, O'Keefe P D, Stiller H P, et al. Stable isotope constraints on the dietary ecology of Gastornis, a Paleogene giant bird. Journal of Vertebrate Paleontology.(https://doi.org/10.1080/02724634.2014.933466)
- [4] Mayr G. A new species of Gastornis (Aves, Gastornithiformes) from the Early Eocene of France. Palaeontologia Electronica, 2020, 23(2): a17.(https://palaeo-electronica.org/content/2020/3821-the-new-species-gastornis-laurenti)
- [5] Mourer-Chauviré C. The endemic birds of the Eocene of France. In: Proceedings of the Eocene vertebrates symposium. Paris: Muséum national d'Histoire naturelle, 2020.(https://palaeo-electronica.org/)
- [6] Hou L. 河南淅川早始新世一新原鸟(淅川中原鸟). 古脊椎动物学报, 1980, 18(2): 111–115.(http://www.vertpaleo.ac.cn/CN/abstract/abstract1019.shtml)
- [7] Worthy T H, WA K A, McInerny M L. The palaeobiology of giant fowls and other megapodes from Australia, Southeast Asia and South America. Journal of Paleontology, 2017, 37(4): 577–599.(https://doi.org/10.5062/palms.2017.3)
- [8] Hébert E. Note sur les oiseaux fossiles de Meudon. Comptes rendus hebdomadaires des séances de l'Académie des sciences, 1855, 40: 101–104.(https://gallica.bnf.fr/ark:/12148/bpt103kpdf)
- 图片来源与说明
- 图3 图4 图5 图6 图7 图8 为论文图版照片,引自 Mayr et al. 2024(Palaeontologia Electronica 27(3): a57,开放获取期刊,DOI 10.26879/1438),分别对应头骨、上喙、下颌、肩带乌喙骨、跗跖骨与砂囊石;该文报道的标本 GMH XVIII-1178-1958 是首件近乎完整的加斯东鸟类头骨,全长约 35 厘米。图1 装架骨架与图2 生活复原画引自 Wikimedia Commons。图9 图10 图11 为本文据上述文献与 Angst et al. 2014、Tutken et al. 2014 自绘。文中年代、产地与食性证据分别取自 Mayr et al. 2024、Angst et al. 2014、Tutken et al. 2014、Hou1980 与 Worthy et al. 2017;标本图版上的英文标签仅作定位之用,标签含义已在图注中用中文给出。